
破译免疫哨兵的“隐身”信号:酸性质谱流揭示 Glu/Asp-ADPr 通讯网
Deciphering cytokine-driven ADP-ribosylation signaling networks via Af1521-based mass spectrometry analysis of labile Glu/Asp-linkages
本文开发了一种基于酸性环境和 Af1521 突变体(K35E/Y145R)的高通量质谱(MS)工作流,用于捕捉极其不稳定的谷氨酸/天冬氨酸修饰(Glu/Asp-ADPr)。研究绘制了细胞因子诱导下的全蛋白质组 ADPr 图谱,首次解析了干扰素触发的抗病毒 PARP 核心信号网络。
TL;DR
长期以来,细胞内的谷氨酸/天冬氨酸 ADP-核糖基化(Glu/Asp-ADPr)修饰因其极度不稳定性而在蛋白质组学研究中处于“隐形”状态。本文通过开发一套全新的酸性制备流程,结合工程化 Af1521 突变体,成功捕捉到了细胞因子诱导下的 900 多个高置信度 ADPr 位点,揭示了一个由干扰素驱动的、跨越细胞质的抗病毒蛋白质通讯网络。
痛点深挖:消失的 60 年信号
ADP-核糖基化(ADPr)由 PARP 系列酶催化,广泛参与 DNA 修复和免疫防御。然而,科学界一直存在争论:到底哪些氨基酸是主要靶点?早期的研究大多聚焦在丝氨酸(Ser)上,这是因为:
- 化学不稳定性:Glu/Asp 上的酯键连接在碱性环境(标准质谱流程 pH 8.5)中会迅速水解。
- 酶学干扰:常用的富集工具 Af1521 宏域蛋白竟然自带“橡皮擦”功能,会擦除目标 Glu/Asp-ADPr 信号。 这导致 Glu/Asp-ADPr 就像一个被碱性洗涤剂洗掉的隐形墨水,在以往的图谱中留下了巨大的空白。
方法论:酸性环境与工程化“陷阱”
为了找回这些丢失的信号,Michael L. Nielsen 团队采取了“化学稳定 + 酶学改造”的双重策略:
- 酸性避风港:作者证明了在 pH 6.3 的酸性缓冲液中,即便在室温下,Glu/Asp-ADPr 也能保持稳定。他们重新调整了胰酶(Trypsin)消化和富集的全部参数。
- 工程化 Af1521 (K35E/Y145R):通过点突变去除了 Af1521 的水解活性,同时增强了对 ADPr 的亲和力。正如文中图 1F 所示,突变体对不稳定修饰的回收率比野生型提高了 10-30 倍。
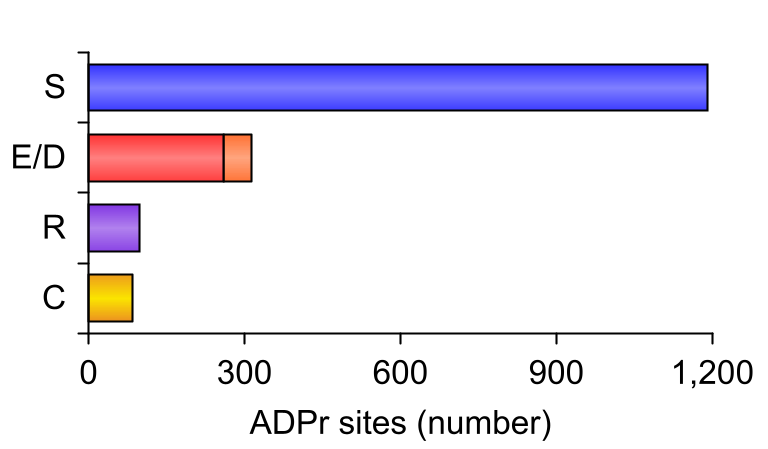 图:酸性实验设计与 Af1521 突变体结构定位(引自原文 Fig 2)
核心发现:干扰素的“指挥棒”
应用该方法,研究组在 A549 细胞中观察到了震撼的动态变化:
1. 干扰素引导的重新分配
干扰素(IFNα/γ)处理后,ADPr 信号不再局限于细胞核,而是大规模出现在细胞质中。有趣的是,丝氨酸 ADPr 几乎不受干扰素影响,而 Glu/Asp 和 Cys(半胱氨酸)修饰则大幅增加,标志着一种残基特异性的免疫开关。
2. 泛素系统的交叉通讯
研究发现 PARP10 能在泛素(Ubiquitin)的 E51、D32 和 E24 位点安装 ADPr 标记。最令人惊讶的是,作者捕捉到了 Ub-ADPr-Ub 这种混合架构链(图 6G),这意味着 ADPr 能够直接干预蛋白质降解的信号密码。
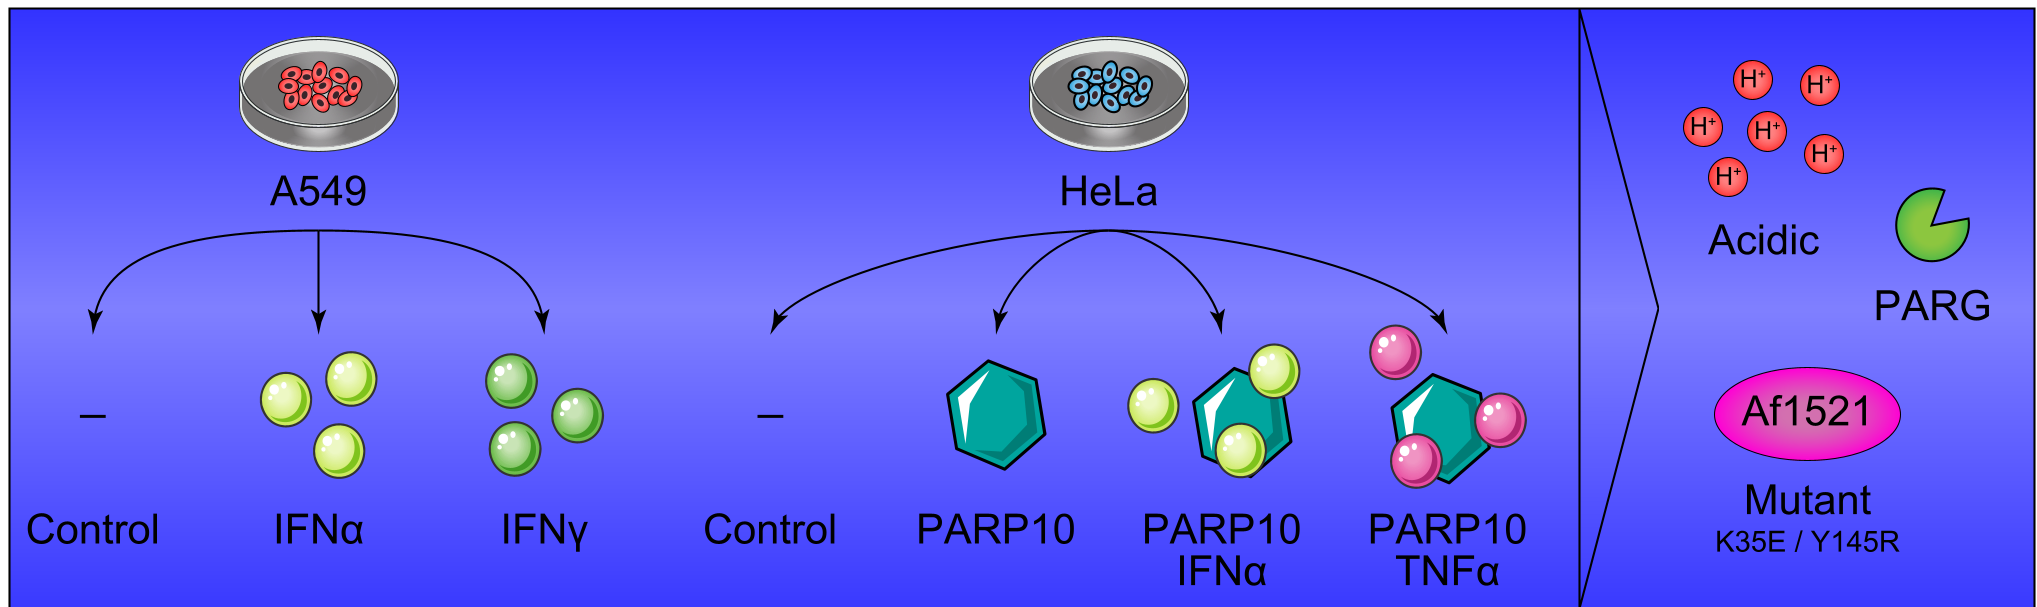 图:不同条件下残基修饰分布的“蜘蛛图”(引自原文 Fig 4)
深度洞察:SOTA 级的资源价值
相比于以往使用羟胺衍生物的方法,本文的优势在于:
- 原生检测:保留了完整的 ADPr 基团,无需化学衍生。
- 全谱覆盖:一次实验同时检测 9 种残基(Ser, Glu, Asp, Cys, Arg 等)。
- 生物学直觉:揭示了由 PARP9/12/14 组成的抗病毒核心网络。PARP14 特别显著,拥有 32 个 Glu/Asp 修饰位点,显示其作为免疫调节中枢的地位。
局限性与展望
尽管该工作在检测深度上达到了 SOTA,但酸性环境下胰酶的活性受限,可能导致长肽段的鉴定效率降低。此外,Cys-ADPr 的生物学功能仍待解析。
总结 (Takeaway): 这项研究不仅是技术上的胜利,更是对蛋白质组学分析逻辑的重构。它告诉我们:如果你看不到某些信号,可能不是它不存在,而是你的试剂盒把它“洗掉”了。未来,这套酸性工作流有望成为免疫信号传导和病毒学研究的标准配置。