
岩石营养硫氧化:跨越 30 亿年的原核生物生化史诗
Biochemistry and molecular biology of lithotrophic sulfur oxidation by taxonomically and ecologically diverse bacteria and archaea
本文系统综述了分类学和生态学多样化原核生物的岩石营养硫氧化(Lithotrophic Sulfur Oxidation)机制。重点讨论了 Alphaproteobacteria 中的 Sox 系统、沉积硫颗粒的“分支硫氧化途径”以及古菌独特的生化过程,揭示了这一古老代谢途径的多样性与演化逻辑。
TL;DR
本文深入探讨了原核生物如何通过多样化的酶系统(如 Sox, Dsr, S4I 途径)将还原态硫化合物转化为能量。研究揭示了从古老的厌氧光养生物到现代好氧趋磁细菌在硫代谢上的本质差异,并提出 horizontal gene transfer (HGT) 是推动全球硫循环进化的核心驱动力。
背景定位:这是一篇里程碑式的跨学科综述,它不仅通过生化细节填补了微观代谢的空白,更在宏观演化坐标系上为“地球早期生命代谢模式”提供了关键视角。
痛点深挖:为何硫氧化没有“万能公式”?
在生物地球化学循环中,硫的氧化态从 -2 到 +6 不等,这要求微生物具备极其复杂的氧化还原酶体系。早期研究者希望找到类似“三羧酸循环”那样的通用路径,但现实是:
- Alphaproteobacteria(如 Paracoccus)可以实现“无中间体”的完美转化。
- 紫色硫细菌 (PSB) 和 绿色硫细菌 (GSB) 却非要制造暂时的“硫颗粒”仓库。
- 古菌 (Archaea) 则完全不按 Bacteria 的套路出牌,使用独特的细胞质 SOR 酶。
作者敏锐地指出,这种“生化多样性”背后隐藏着微生物应对不同环境潜力(pH, 温度, 氧分压)的选择压力。
核心方法论:三大代谢路径解析
1. Sox 途径:完美的直接转化
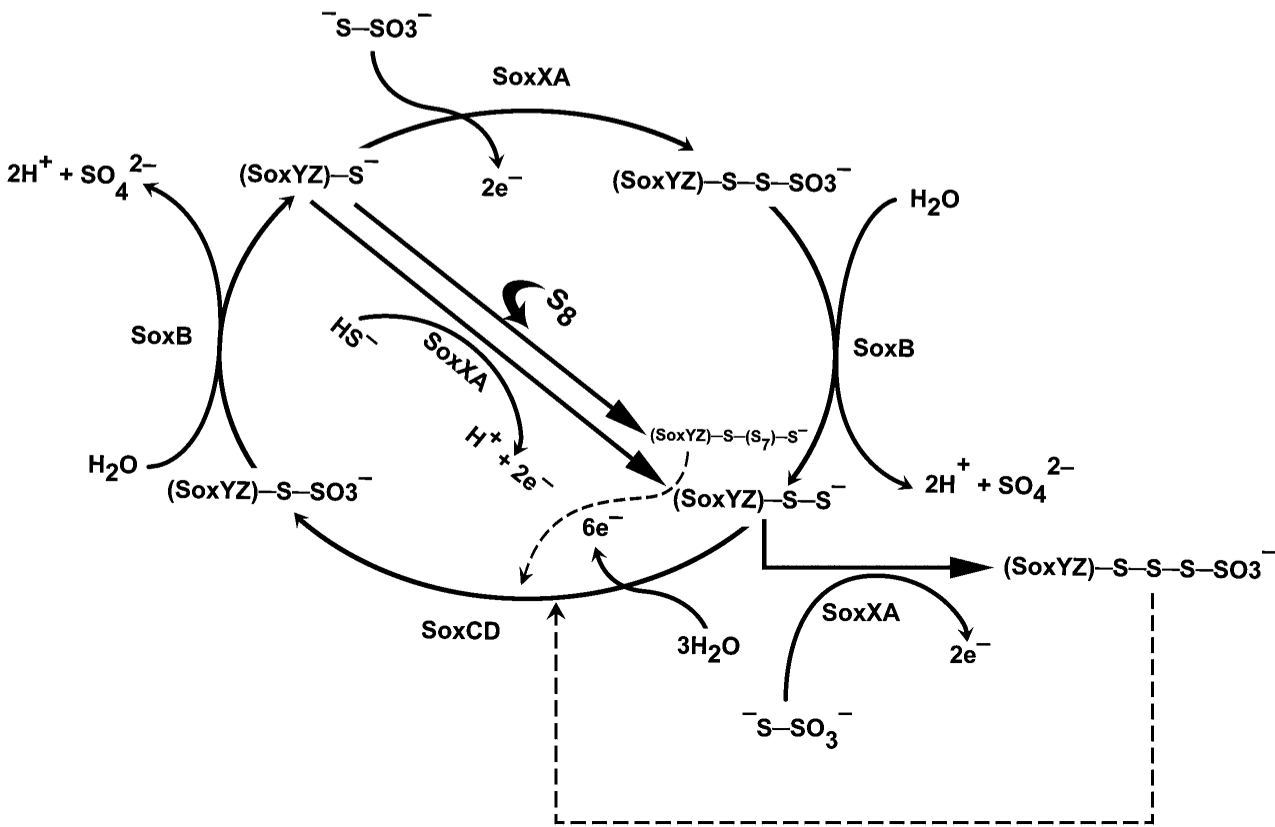
在好氧的 Paracoccus 中,Sox 系统通过一套 periplasmic 多酶复合体(SoxXAYZB, SoxCD)将硫代硫酸盐直接氧化为硫酸盐。其关键在于 SoxYZ 蛋白,它像一根“摆动臂”,将硫中间体锚定在半胱氨酸残基上,避免了反应中间体的流失。
2. 分支途径:硫颗粒的秘密仓库
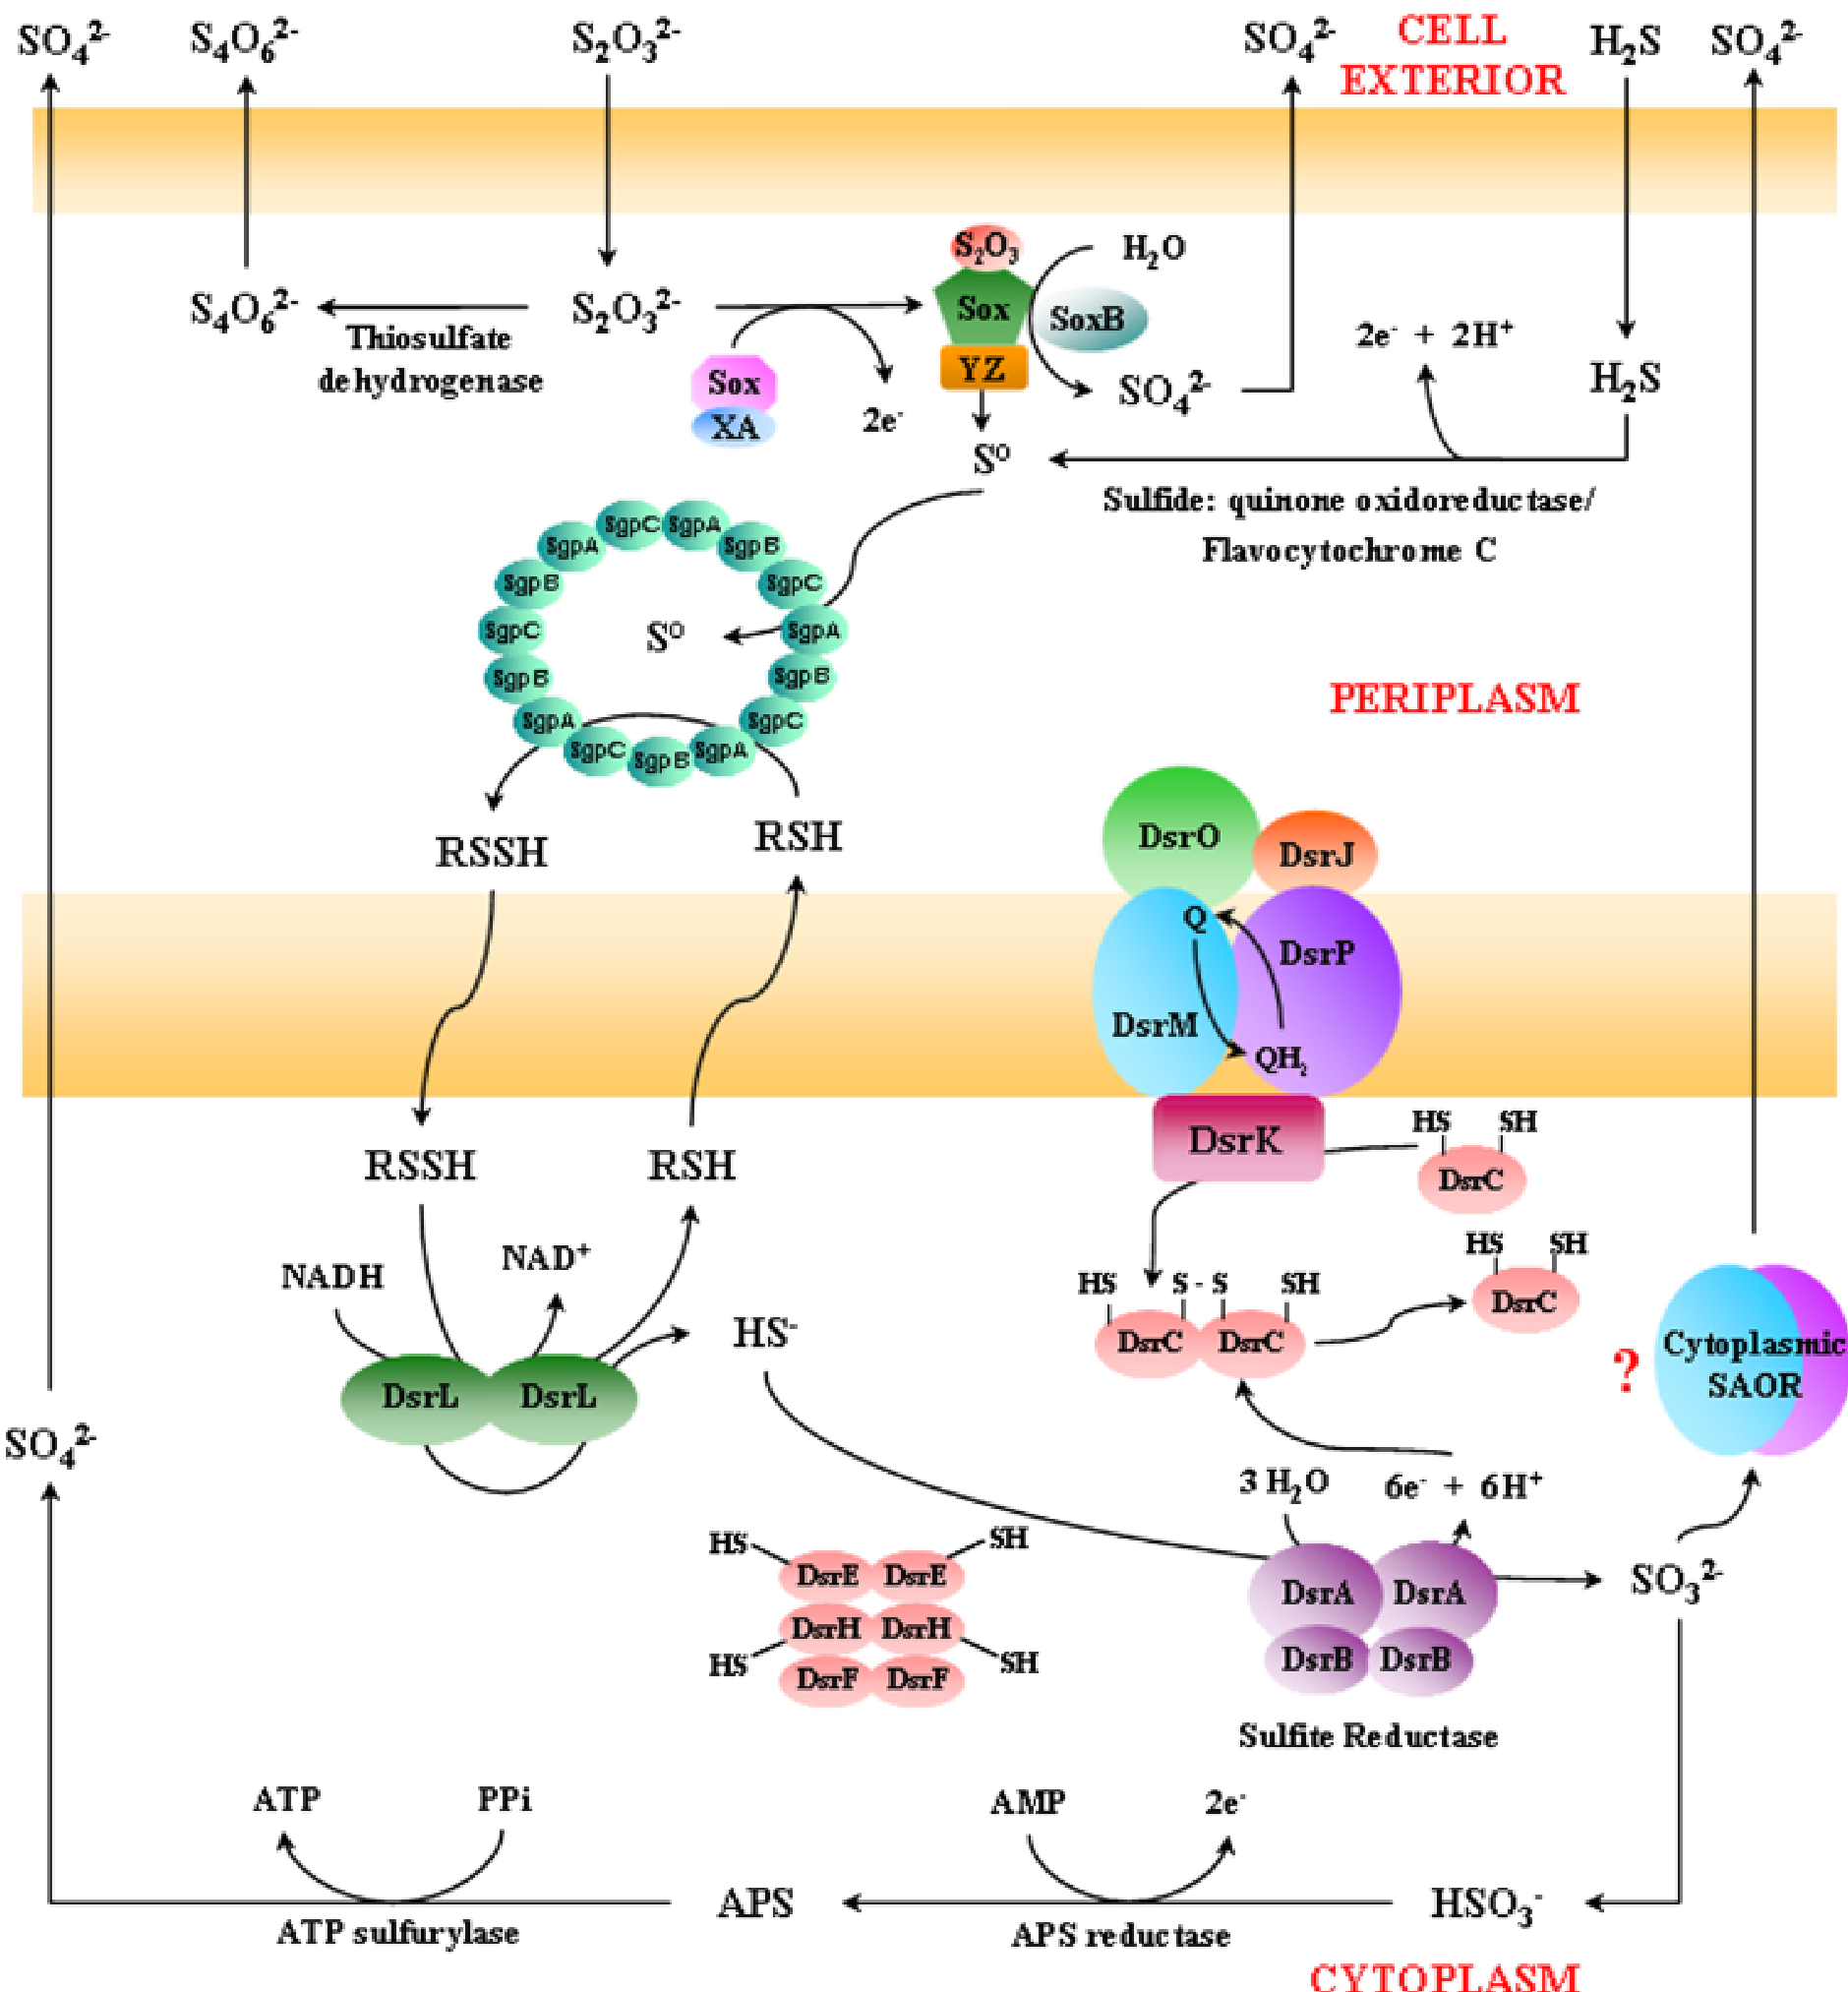
许多厌氧光养生物由于缺失了 SoxCD(硫脱氢酶),无法直接完成全过程,转而将硫元素以单质形式(S0)暂时沉积。随后,它们“倒转”了本用于脱硫生成的 DsrAB 酶(异化型亚硫酸盐还原酶),实现逆向氧化。
3. S4I 途径:酸性环境的生存法则
在嗜酸性细菌中,硫代硫酸盐在酸保护下通过生成 Tetrathionate(四硫代硫酸盐)中间体进行代谢。这一途径虽然能量效率极低,却是这些生物在 pH < 4 环境下避免底物自发分解的唯一方案。
实验与结果:古菌的独特策略
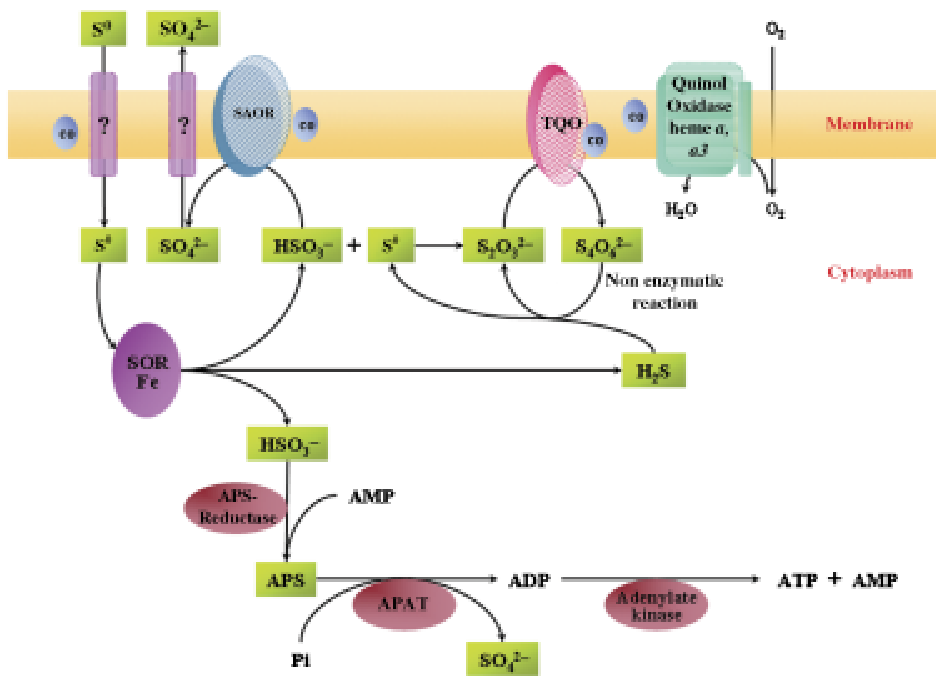
文章详细比对了古菌 Acidianus ambivalens。不同于细菌,其硫氧化发生在细胞质中,依赖于 SOR (Sulfur Oxygenase Reductase)。
- 关键发现:SOR 能够同时催化歧化和氧化反应,生成亚硫酸盐、硫化氢和硫代硫酸盐。
- 量化分析:作者解析了 SOR 的 24 聚体球状结构,证实其内部存在受控的反应腔室,这在进化上具有高度的独立性。
深度洞察:演化的“拿来主义”
本文最深刻的洞见在于对 Sox 基因起源 的讨论。尽管 Sox 目前常见于好氧生物,但其核心构件可能起源于深海热液喷口的嫌气环境。通过频繁的水平基因转移,这一高效的能量提取模块被不同谱系的生物吸收并改造(例如删减 SoxCD 以适应沉积硫颗粒的需求)。
总结与局限性
Takeaway: 硫氧化不是一条直线,而是一张复杂的网。Sox 系统的灵活性使其成为了原核生物界的“生化瑞士军刀”。 局限性: 尽管基因组学提供了大量同源信息,但许多非模式生物中 Sox 同源蛋白的真实催化功能(In vitro activity)仍缺乏实验验证,尤其是它们如何与多变的环境电子受体(如 Fe3+, NO3-)协同工作。
关键词:Sulfur Oxidation, Sox System, Chemolithotrophy, Dsr Complex, Microbial Evolution.