
BDBV 抗体信号究竟来自疫苗、暴露,还是背景?一项五年真实世界队列给出的边界
Bundibugyo virus glycoprotein seroreactivity following recombinant vesicular stomatitis virus–Zaire Ebola virus glycoprotein vaccination in outbreak-affected populations of the Democratic Republic of the Congo: a longitudinal cohort study
本文报道了一项刚果民主共和国两地区五年纵向队列研究,使用泛丝状病毒多路免疫分析评估 rVSVΔG-ZEBOV-GP 接种后 Bundibugyo virus 糖蛋白抗体反应。研究纳入 1081 名参与者并提供 5849 份血清样本,发现 Beni 和 Mbandaka 的 BDBV 糖蛋白血清反应轨迹明显不同:Beni 在 21 天和 6 个月迅速升高,Mbandaka 在 2.5 到 3.5 年间出现大幅升高后回落。该工作为 BDBV 疫情期间评估现有埃博拉病疫苗的潜在交叉反应提供了首批真实世界长期人类数据。
核心速览
TL;DR
这项发表在 Lancet 的队列研究追踪了刚果民主共和国 Mbandaka 和 Beni 两地在 2018 年埃博拉病疫情中接受 rVSVΔG-ZEBOV-GP 环状接种的 1081 人,共分析 5849 份血清样本。结果显示,BDBV 糖蛋白血清反应并非在所有接种人群中以相同方式出现:Beni 在接种后 21 天和 6 个月迅速升高,而 Mbandaka 在早期没有明显变化,却在 2.5 到 3.5 年之间从 5% 阳性率升至 35%,随后下降。文章因此支持开展更严格的临床和流行病学研究,但并未把结合抗体直接解释为对 BDBV 的保护力。
背景定位
这篇工作属于实证/分析型纵向队列研究,而不是提出新统计模型或新疫苗平台。其定位非常具体:在 2026 年 BDBV 疫情扩大、且尚无获批 BDBV 疫苗的紧急背景下,作者利用 2018 年起就存在的真实世界疫苗队列,补上了此前人体研究中最缺失的一块,即长期 BDBV 糖蛋白血清反应动力学。原文 Research in context 指出,此前有 NEJM correspondence 报告早期交叉反应,但没有已发表研究系统评估 rVSVΔG-ZEBOV-GP 后 BDBV 糖蛋白血清反应的长期纵向动力学。
问题与动机
现有问题不是“疫苗是否诱导抗体”这么简单,而是“检测到的 BDBV 糖蛋白血清反应能否被干净地归因于 rVSVΔG-ZEBOV-GP”。在临床研究中,接种前后短期血清学通常可以比较,但在疫情部署的真实世界场景中,同一人群可能同时经历既往丝状病毒暴露、多次环状接种、后续加强针、局部 EBOV 疫情、甚至未被诊断的亚临床感染。刚果民主共和国东部尤其复杂:North Kivu 长期处于 EBOV、SUDV 和 BDBV 反复风险区域,而 Equateur 又在研究期间经历 2020 和 2022 年的 EBOV 再发疫情。
这导致一个关键失效机制:如果只在某一时间点发现 BDBV 糖蛋白抗体阳性,很难判断它是疫苗诱导的交叉反应、既往感染留下的痕迹、环境性非特异背景,还是某次未记录暴露后的急性应答。论文在 Discussion 中明确指出,两地在 BDBV 糖蛋白血清反应上的差异提示影响因素不止疫苗本身;基线阳性率、既往暴露、免疫预激、环境因素和其他未识别抗原刺激都可能参与。
核心分析
一、血清反应不是“保护”,而是多路 MFI 经过校正和阈值化后的读数
本文的抗体测量来自 pan-filovirus multiplex immunoassay,靶标包括 EBOV 糖蛋白、EBOV 核蛋白、EBOV VP40、BDBV 糖蛋白、SUDV 糖蛋白、Marburg 病毒糖蛋白和 Marburg 病毒 VP40。所有样本以 1:100 稀释复孔检测,输出为每个抗原的 median fluorescent intensity。因为 MFI 是相对信号而不是精确抗体滴度,作者先用牛血清白蛋白偶联微球作为背景,再进行校正:
其中 表示抗原靶标, 表示个体样本, 是该样本在目标抗原上的原始平均荧光强度, 是同一血清在牛血清白蛋白背景微球上的信号, 用于把负值截断为 0。这个式子在论文中承担“信号净化”的角色:它把非特异性结合、 beads 背景和样本自身基质差异尽量从 filovirus 特异信号中剥离出来。若不做这一步,不同批次 beads 或不同样本的高背景可能被误读为 BDBV 糖蛋白反应性升高。但该校正也有边界:截断为 0 会压缩低反应者的真实差异,而且校正后的 MFI 仍然只是结合信号,不代表中和能力。
为了把连续 MFI 转成可跨时间比较的“阳性事件”,论文使用刚果民主共和国本地非暴露队列设定 cutoff:
其中 表示随访时点, 是二值血清反应指标, 是该抗原在 Kinshasa 非暴露队列中 BSA 校正后平均 MFI 加 3 个标准差得到的阈值,原文给出该本地对照队列 。这个阈值化操作的作用是使跨访视、跨抗原比较成为可能,也解释了为什么 Mbandaka 在 2.5 年时只有 16 人阳性,而 3.5 年时 116 人跨过同一类阈值后,阳性率跃升到 35%。然而它并不是绝对生物学分界线:cutoff 来自本地 naive population,若既往丝状病毒暴露造成低水平持续背景,或者不同 antigen lots 的灵敏度略有变化,阳性率会被显著影响。原文也指出 MFI 输出有固有变异,不能直接等同于精确抗体滴度。
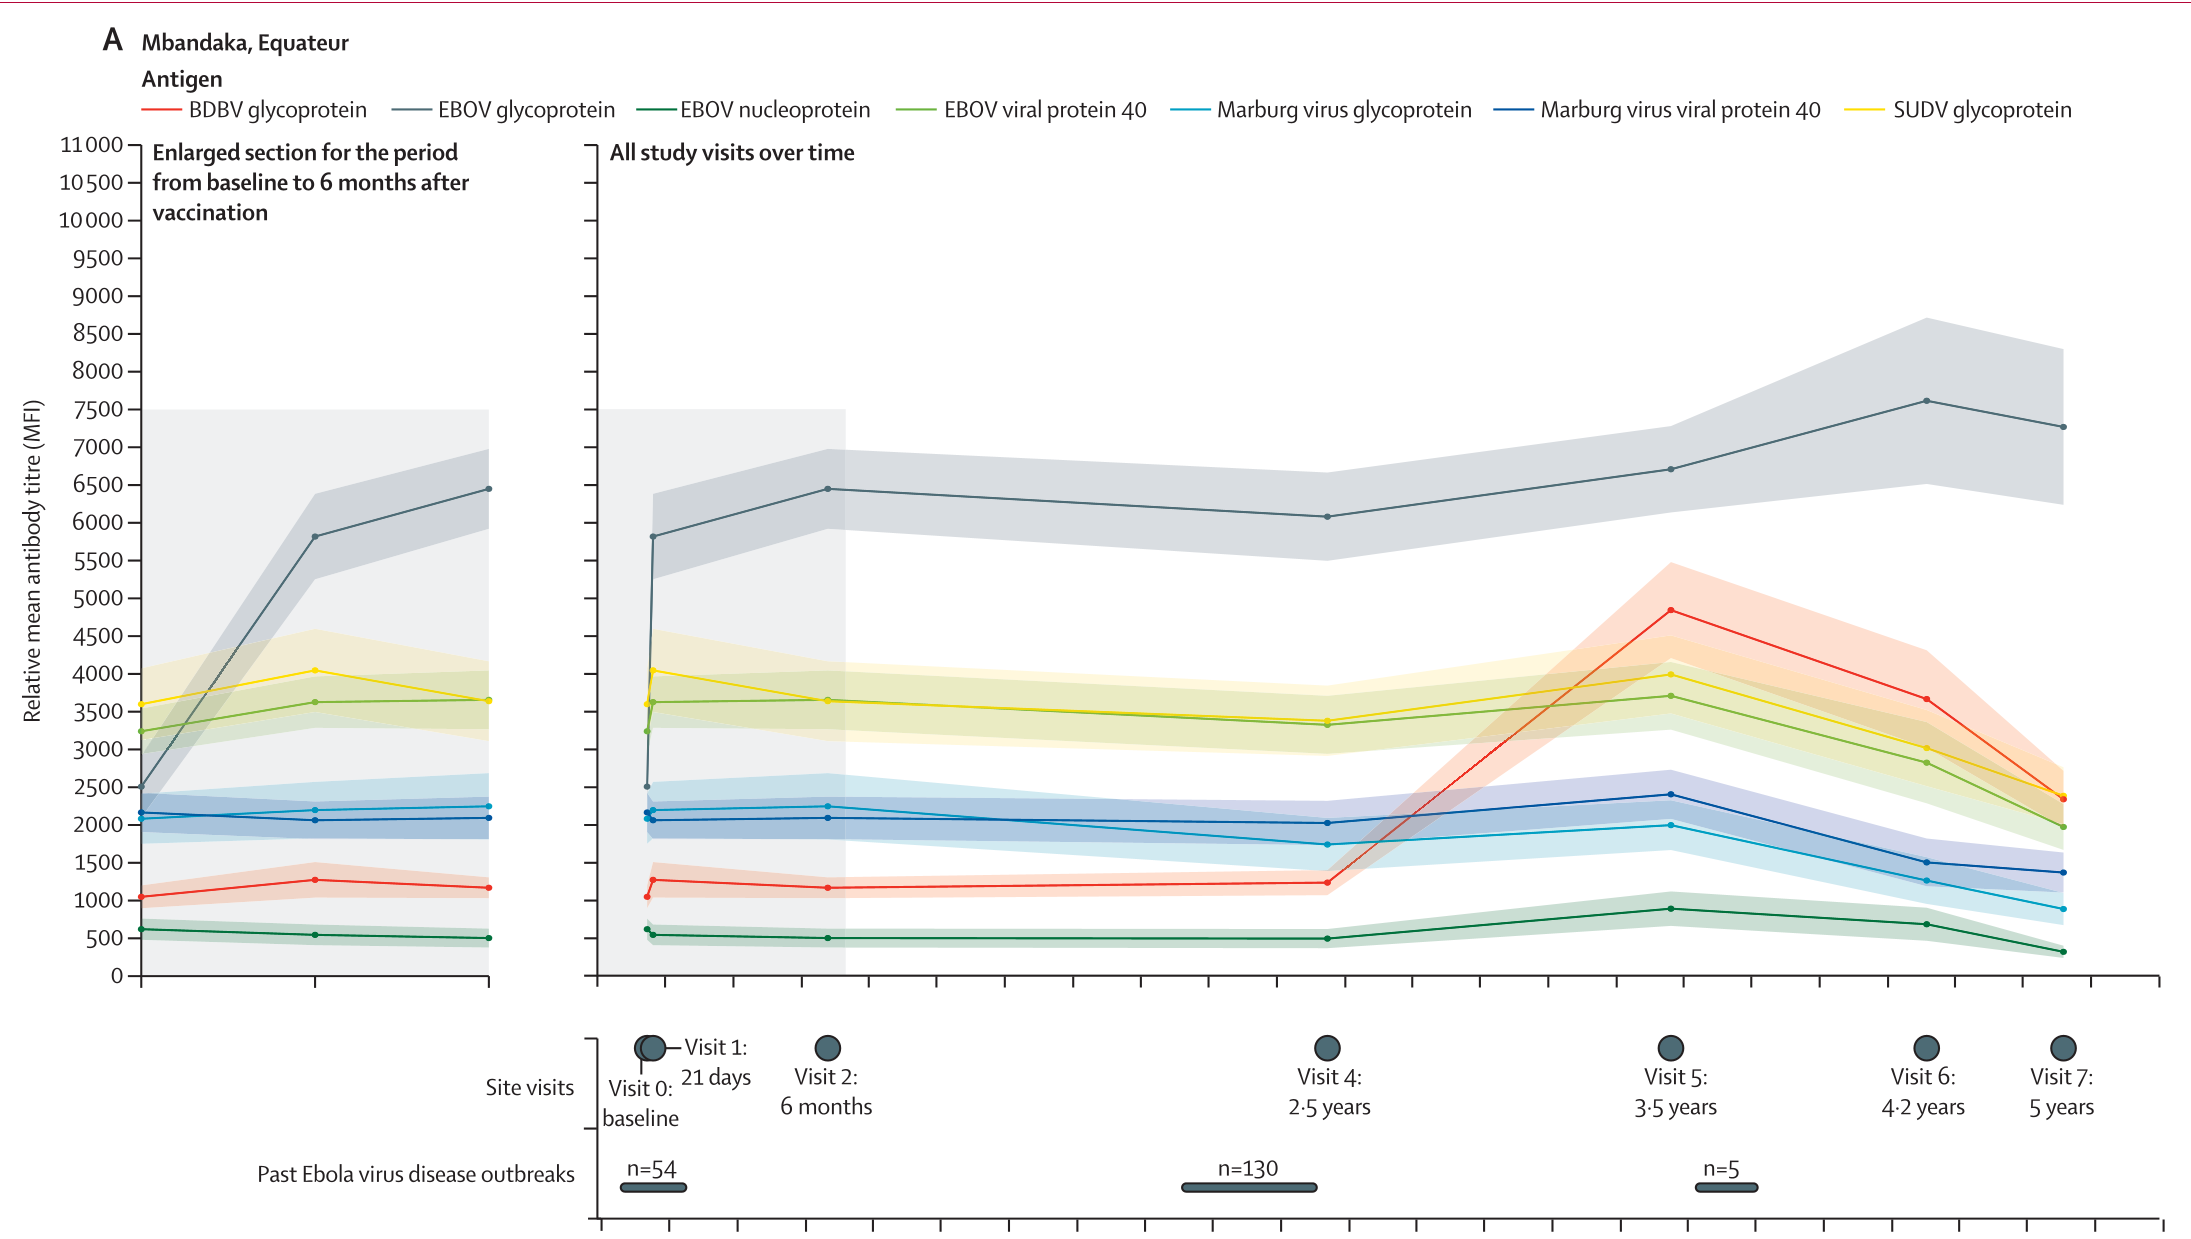
二、五年七个访视把急性疫苗应答与后期背景波动分离开来
研究设计的真正价值在于时间结构。Table 1 报告了两个队列的访视日期和大致时间点:
| 随访节点 | 距基线大致时间 | Mbandaka 日期 | Beni 日期 |
|---|---|---|---|
| 基线 | 当日 | 2018 年 6 月 2 日 | 2018 年 8 月 15 日 |
| 随访 1 | 约 21 天 | 2018 年 6 月 20 日 | 2018 年 9 月 4 日 |
| 随访 2 | 约 6 个月 | 2019 年 2 月 5 日 | 2019 年 3 月 22 日 |
| 随访 3 | 约 1.5 年 | 未访视 | 2020 年 1 月 4 日 |
| 随访 4 | 约 2.5 年 | 2020 年 12 月 8 日 | 2020 年 12 月 14 日 |
| 随访 5 | 约 3.5 年 | 2022 年 3 月 15 日 | 2022 年 4 月 30 日 |
| 随访 6 | 约 4.2 年 | 2023 年 2 月 22 日 | 未访视 |
| 随访 7 | 约 5 年 | 2023 年 8 月 25 日 | 2023 年 12 月 1 日 |
Table 1 显示两省随访窗口并不完全对称:Beni 有 1.5 年访视,Mbandaka 没有;Mbandaka 有 4.2 年访视,Beni 没有;Mbandaka 的 4.2 年访视还与一次 rVSVΔG-ZEBOV-GP 加强针发放重合。这种设计使作者能区分早期、中期和晚期事件,但不能精确定位两次访视之间发生了什么。论文统计部分明确说明,分析以时间点和均值为主,没有显式建模个体内重复测量相关性;因此“某时点均值上升”是非常强的描述性证据,但不是严格的轨迹因果模型。
从免疫解释看,21 天和 6 个月这两个点最有价值,因为它们更接近疫苗部署后的早期应答。Beni 在这两个点出现 BDBV 糖蛋白阳性率显著上升,符合疫苗相关免疫激活的时间窗口。Mbandaka 的 21 天和 6 个月没有观察到 BDBV 糖蛋白变化,却在 3.5 年突然上升;如果疫苗后短期没有反应,而多年后出现一个孤立尖峰,那么单靠 rVSVΔG-ZEBOV-GP 很难解释,必须把暴露、本地疫情或检测背景纳入解释空间。
三、Beni 和 Mbandaka 的差异让“疫苗交叉反应”必须分层理解
Table 2 描述了队列构成:1081 人中 715 人为男性,占 66%,366 人为女性,占 34%;Mbandaka 的 482 人和 Beni 的 599 人分别来自三个健康区;约三分之一参与者被记录为卫生工作者。接种资格以 WHO 环状接种策略为主,包括病例接触者、接触者的接触者、卫生工作者和其他风险人员。值得注意的是,多个标准之间存在重叠,论文明确说明这些类别不互斥且共线,因此不能简单把某个接种资格类别解释成独立免疫决定因素。
论文用 fold change 描述基线血清阴性者随后阳性时的相对增幅:
其中 是基线校正 MFI, 是某随访时点的校正 MFI。论文在计算平均倍数变化时只纳入每个访视中血清反应阳性的人,并排除基线已经阳性的人,原因包括评估疫苗表现,以及减少 multiplex assay 上限检测值带来的偏倚。这个指标的作用不是证明绝对抗体浓度增加了多少,而是回答“从低背景状态升起来的人,升得多不多”。它的边界也很明显:分母可能受到低值、批次、稀释度和背景校正影响;当某些人长期保持高水平阳性时,这种基线排除策略反而会改变总体解释。
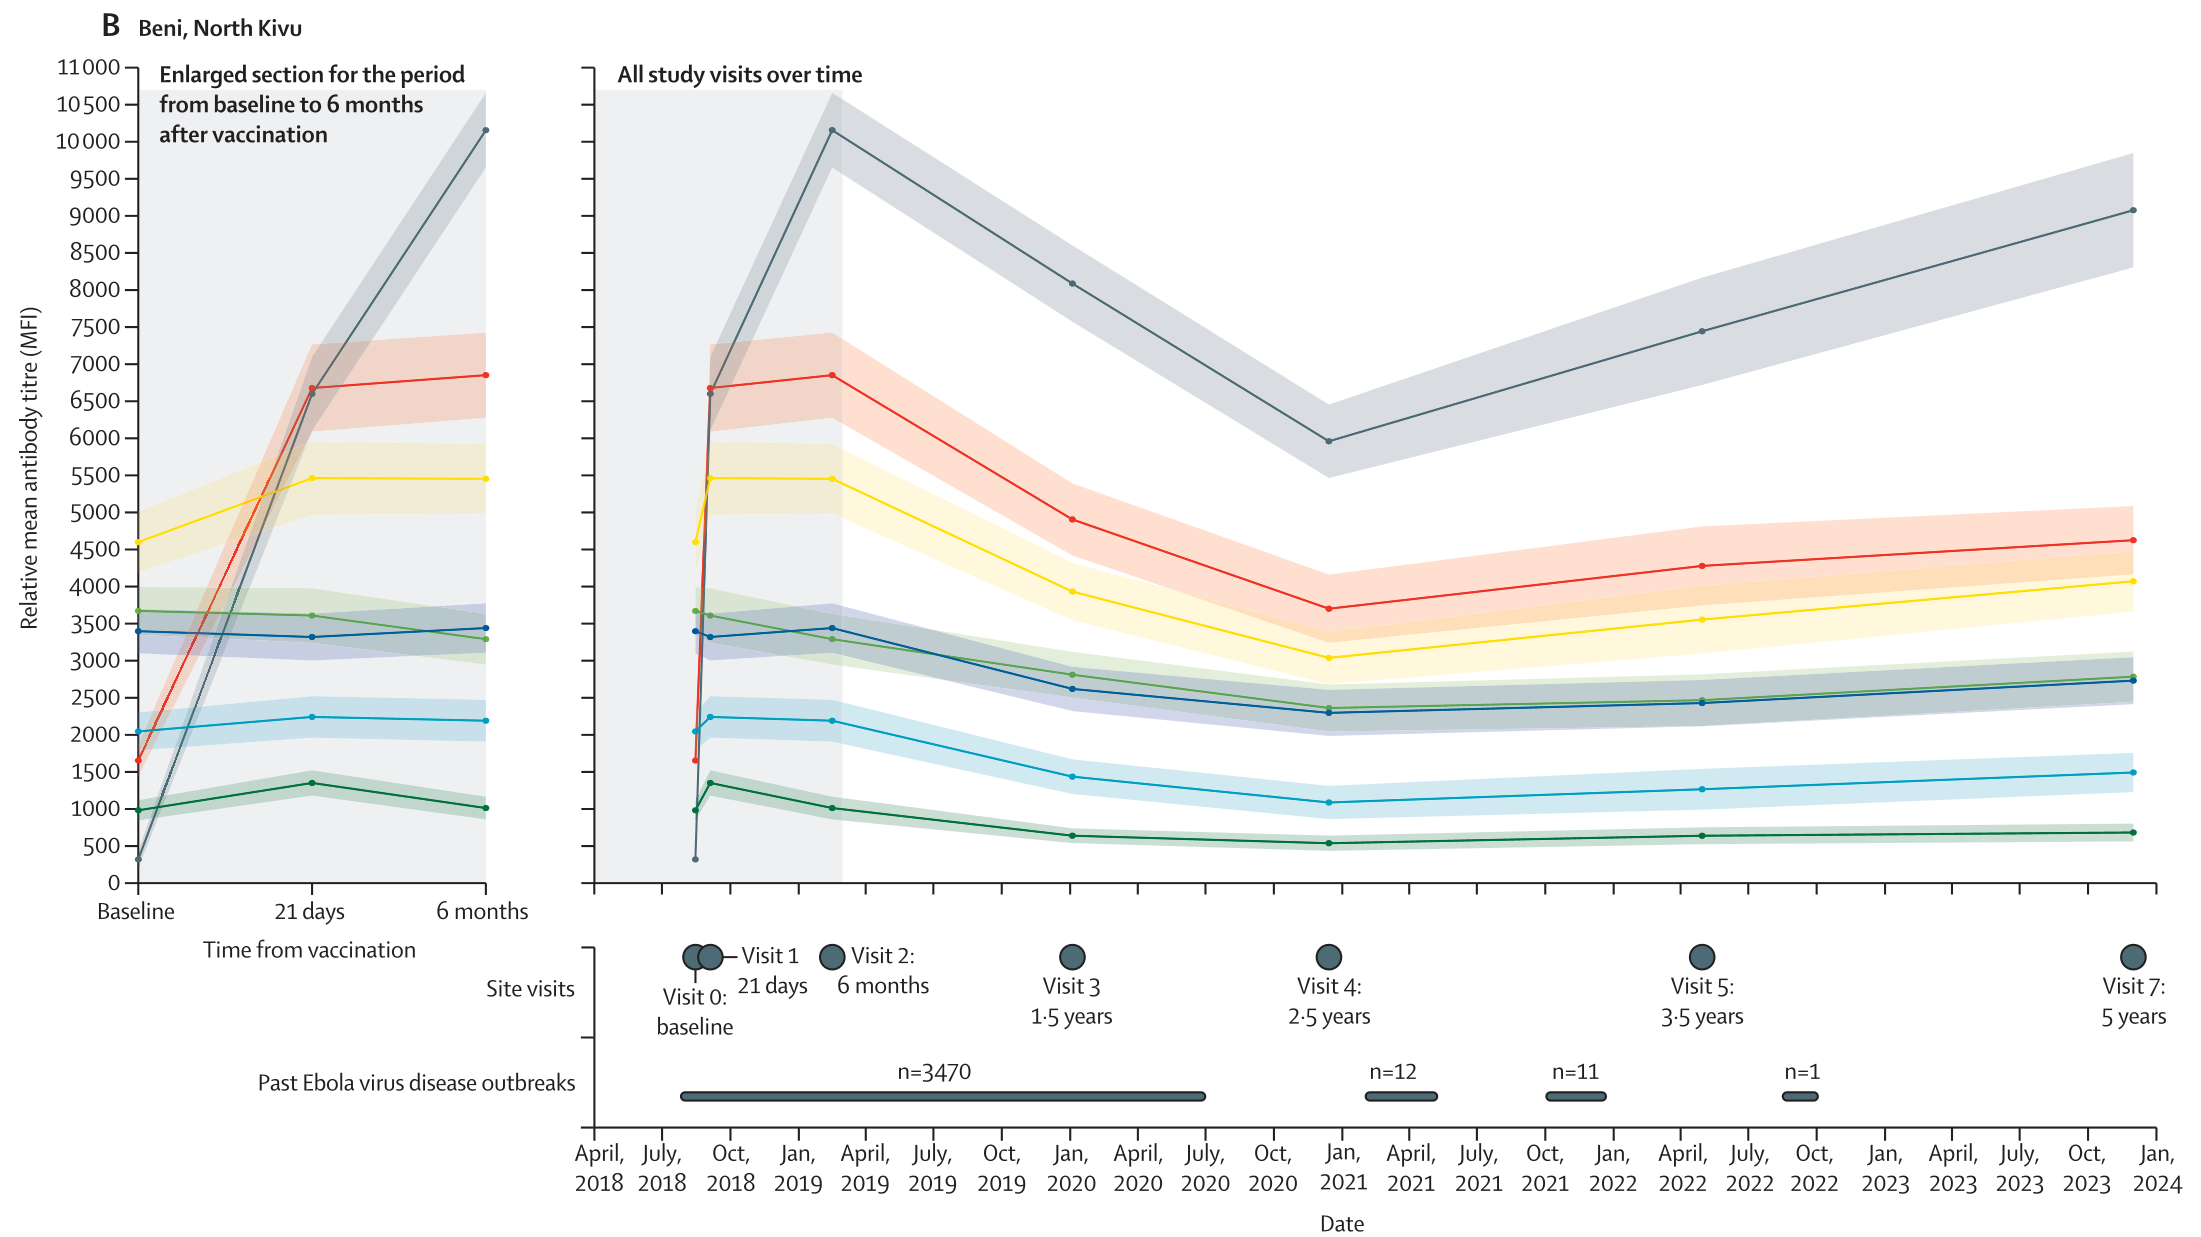
Beni 的早期轨迹更符合疫苗后抗体动力学:BDBV 糖蛋白血清反应阳性比例从基线 599 人中的 62 人,即 10%,升至 21 天 541 人中的 283 人,即 52%,并在 6 个月 501 人中仍为 270 人,即 54%。在 241 名基线阴性并于 21 天转阳的参与者中,平均 fold change 为 21.9,95% CI 为 18.5–25.3;在 227 名基线阴性并于 6 个月转阳的参与者中,平均 fold change 为 20.1,95% CI 为 17.0–23.1。虽然 6 个月后抗体水平下降,但 EBOV 糖蛋白和 BDBV 糖蛋白反应性在 5 年随访中仍高于基线。
Mbandaka 的轨迹则像一次后期“聚集性上升”:基线 482 人中有 16 人阳性,占 3%;21 天和 6 个月未观察到 BDBV 糖蛋白变化;到 2.5 年,平均 MFI 为 1238,标准差 1599,355 人中 16 人阳性,占 5%;到 3.5 年,平均 MFI 升至 4845,标准差 5881,329 人中 116 人阳性,占 35%,统计检验显示差异具有显著性。随后阳性率下降至 4.2 年 26% 和 5 年 18%。更关键的是,这个上升点恰好与 Wangata、Mbandaka 和 Bolenge 重叠地区的疫情事件接近:论文 Methods 指出 2.5 年访视发生在刚果民主共和国第 11 次疫情后不到一个月,而 3.5 年访视后数周又出现含 5 名确诊者的新疫情,并被列为第 14 次疫情。作者没有把 BDBV 糖蛋白 3.5 年尖峰直接归因于某次疫情,因为数据无法证明;但这说明 Mbandaka 的 BDBV 血清反应可能混合了疫苗、本地 EBOV 暴露和未识别 filovirus 抗原刺激。

实验与证据
主结果的核心不是某一抗原单点数值,而是跨地区和跨时间的一致性检验。Table 中列出论文关键数据,便于比较两队列:
| 队列 | 时间点 | 参与样本数 | BDBV 糖蛋白血清反应阳性 | BDBV 平均 MFI |
|---|---|---|---|---|
| Beni | 基线 | 599 | 62,占 10% | 1653 |
| Beni | 约 21 天 | 541 | 283,占 52% | 6678 |
| Beni | 约 6 个月 | 501 | 270,占 54% | 6852 |
| Mbandaka | 约 2.5 年 | 355 | 16,占 5% | 1238 |
| Mbandaka | 约 3.5 年 | 329 | 116,占 35% | 4845 |
这张表说明两个事实:Beni 的 BDBV 血清反应在接种后早期就明显抬升,Mbandaka 的抬升主要发生在 3.5 年;二者不能用一个平滑的疫苗后抗体衰减曲线概括。Figures 1 和 2 以及 Results 文本支持这一判断,其中 Mbandaka 2.5 到 3.5 年的上升差异显著,Beni 基线到 21 天的上升差异显著。EBOV 糖蛋白也呈现类似地域差异:Mbandaka 基线有 139 人反应阳性,占 29%,3.5 年有 241 人阳性,占 73%;Beni 基线 EBOV 糖蛋白阳性为 23 人,占 4%。这说明 BDBV 信号变化并不是孤立现象,而与本地 EBOV 暴露或接种背景存在纠缠。
拆解性证据来自 fold change 和附录统计。Table 列出论文报告的关键倍数变化:
| 队列 | 人群条件 | 时间点 | 平均倍数变化 | 95% CI |
|---|---|---|---|---|
| Mbandaka | 基线 BDBV 阴性、3.5 年阳性 | 约 3.5 年 | 14.2 | 11.2–17.1 |
| Beni | 基线 BDBV 阴性、21 天阳性 | 约 21 天 | 21.9 | 18.5–25.3 |
| Beni | 基线 BDBV 阴性、6 个月阳性 | 约 6 个月 | 20.1 | 17.0–23.1 |
| Mbandaka | 基线 EBOV 糖蛋白阴性、3.5 年阳性 | 约 3.5 年 | 4158.2 | 3320.4–4995.9 |
这些数据来自 Results 和 appendix p 4。它们的作用是把“阳性人数增加”转化为“从阴性到阳性者有多大幅度的相对提升”。Beni 的 21.9 和 20.1 支持疫苗后早期 BDBV 糖蛋白抗体扩增;Mbandaka 的 14.2 也显示部分基线阴性者后来显著上升,但 EBOV 糖蛋白 4158.2 的巨大 fold change 提醒我们,当地可能同时存在强抗原刺激或检测尺度极端变化,不能仅凭 BDBV 一项作轻率归因。
性别分析提供了另一种拆解:Results 指出在 BDBV 糖蛋白平均 MFI 中观察到性别显著关联,男性高于女性,见 appendix pp 5–6。年龄、职业组和接种资格类别未观察到明显差异,但作者同时说明多人符合多个接种资格,类别不互斥且共线。因此,这篇论文的“控制变量”并非严格随机对照,而是描述性分层和统计校正的组合;它足以产生假设,不足以排除地区暴露差异。
证据质量方面,最强的是长期、同人群、多抗原、同 assay 框架下的时间序列观察:5849 份血清、五年随访、七次数据收集、两个地理队列。较弱的部分包括:Mbandaka 3.5 年的 BDBV 尖峰与疫情时间接近,但论文不能证明因果;两省访视窗口不对称;随访期间存在疫苗加强针和多次 EBOV 疫情;个体重复测量未显式建模;血清反应基于单一 1:100 稀释度;结合抗体不等于功能中和或保护。论文 Discussion 本身对这些边界有清楚说明,这反而增强了文章作为政策证据的可信度。
深度洞察与总结
总结
这项工作的机制性贡献在于把 BDBV 糖蛋白血清反应从“疫苗后是否检出”的横截面问题,推入“在何种时间、何种人群、何种抗原背景下检出”的纵向问题。Beni 早期 21 天和 6 个月的阳性率与 fold change 支持 rVSVΔG-ZEBOV-GP 可诱导或放大 BDBV 交叉抗体信号;Mbandaka 3.5 年的孤立上升则显示真实世界队列中血清学信号可能被既往暴露、本地疫情和其他抗原刺激重塑。
局限性
局限性具体且可检验:第一,研究未能在功能层面验证 BDBV 保护,因为 multiplex immunoassay 只能测量结合抗体,不能证明中和或 Fc 介导效应功能;第二,基线 BDBV 阳性,尤其 Beni 的 10%,来源无法从这些数据确定;第三,4.2 年 Mbandaka 加强针和 3.5 年前后疫情与 BDBV 上升的时序交错,使疫苗效应、暴露效应和检测偏倚无法完全分离;第四,个体内相关性未建模,时间点均值差异不能自动等同于个体轨迹变化;第五,单一稀释度、多批次 beads 和 MFI 的非线性可能限制精确定量。
未来展望
最自然的下一步不是单纯重复同一血清学面板,而是把 BDBV 糖蛋白反应放到“功能保护”和“流行病学暴露”两个维度同时验证。具体而言,应纳入假病毒或活病毒中和试验、人类 IgG 标准品、高低应答者的 serial dilution、更细密的时间采样、与既往疫情和健康区接种记录链接的暴露史,以及对 BDBV、SUDV、EBOV 和 Marburg 多抗原谱的系统比较。若后续能在同一人群内证明 BDBV 糖蛋白抗体与真实中和活性相关,并排除基线阳性人群的偏倚,这篇文章才会从“提示”上升为“指导部署”的证据等级。