
铵污染如何压垮地下水微生物网络:从 hao 基因抑制到模块度坍塌
Impact of human activities on groundwater biogeochemical cycles and microbial communities: Insights from metagenomic analysis
本文通过上海城市污染地下水与加州Calistoga近原始山地含水层的端点比较,发现人为铵污染引发细菌群落重排、能量密集型生物地球化学基因下调和微生物共现网络坍塌。随机森林与差异丰度分析将NH4+识别为核心驱动,尤其通过hao基因抑制破坏硝化通路,并提出源头控铵与网络修复并重的双轨框架。
核心速览
TL;DR
本文把上海三处废弃工厂下方城市地下水和美国加州Calistoga近原始山地含水层作为两个极端端点,利用13个宏基因组样本比较了NH4+和NO3−严重升高的地下水系统。论文发现城市细菌群落与山地群落沿PCoA主轴分离,系统类型解释细菌组成变异的74%,细菌Shannon多样性从约5.73降至约3.68,降幅34%;群落从以Actinomycetota和Streptomyces为主的互作型结构,转向Pseudomonadota相对丰度约0.86的压力耐受型结构。功能层面,hao、nxrB、cdhC、cdhE、ddhA、ddhC等能量密集型或核心元素循环基因普遍下调,有机硫代谢基因dddT、tsdB等富集。共现网络显示城市网络连接数和模块度剧烈降低,随机森林则把NH4+识别为最核心驱动因子。
背景定位
这项研究不是开发新的测序算法或网络推断方法,而是以多组学和统计归因为轴的生态诊断工作。它的坐标位置在于把地下水氮污染研究从“浓度—类群—过程”的常规路径,推进到“污染源—限速基因—互作网络—生态系统韧性”的级联框架。论文的价值不在于网络推断技术本身,而在于用端点梯度把城市与原始含水层的差异放大,并用模型比较把NH4+从NO3−和pH中区分出来。
问题与动机
现有地下水氮污染研究通常围绕硝酸盐浓度、反硝化速率、AOA/AOB转换或某些功能基因丰度展开,这些工作能够告诉我们“谁多了、谁少了”,却不容易说明“为什么整个系统会失去缓冲能力”。本文的痛点落点很具体:在长期高强度铵输入下,群落重组是否只停留在分类学替换,还是会导致能量密集型过程被选择压制,并最终表现为共现网络的拓扑坍塌。论文提出的三个假设对应这三层:社区结构从互作转向胁迫耐受、代谢从高效产能转向低能耗生存、网络从复杂模块转向低稳定性。
作者选择极端端点比较,是因为中等污染梯度容易把自然水文背景、气候差异和污染信号混在一起。上海城市样点与Calistoga山地样点的NH4+和NO3−分别约为28倍和10倍差距,使人为压力成为主导变量,同时论文还通过重分析已有数据集保持采样流程可比性。这里的研究直觉不是单纯来自工程经验,而是有理论支点:污染诱导代谢解耦认为高污染负荷会破坏电子传递链,迫使群落放弃高能路径。
核心章节:端点比较揭示的多层次崩塌
现象与度量:群落、基因与功能潜能同步异化
论文首先在群落实测上给出强证据。Bray-Curtis PCoA显示,城市样点611、621、622与山地样点Pr在细菌组成上分离,且城市内部三个工业点也有亚簇,说明污染类型和局部历史会影响群落微结构;但系统类型仍然是主轴。原文报告PCoA前两轴共解释76.21%的变异,其中PCo1解释62.75%,PERMANOVA进一步给出系统类型对细菌群落变异的R2为0.74,P低于0.001。相较之下,古菌和病毒组成没有显著按系统分离,这本身很重要:它说明细菌是本次崩塌中最敏感的“示警层”。
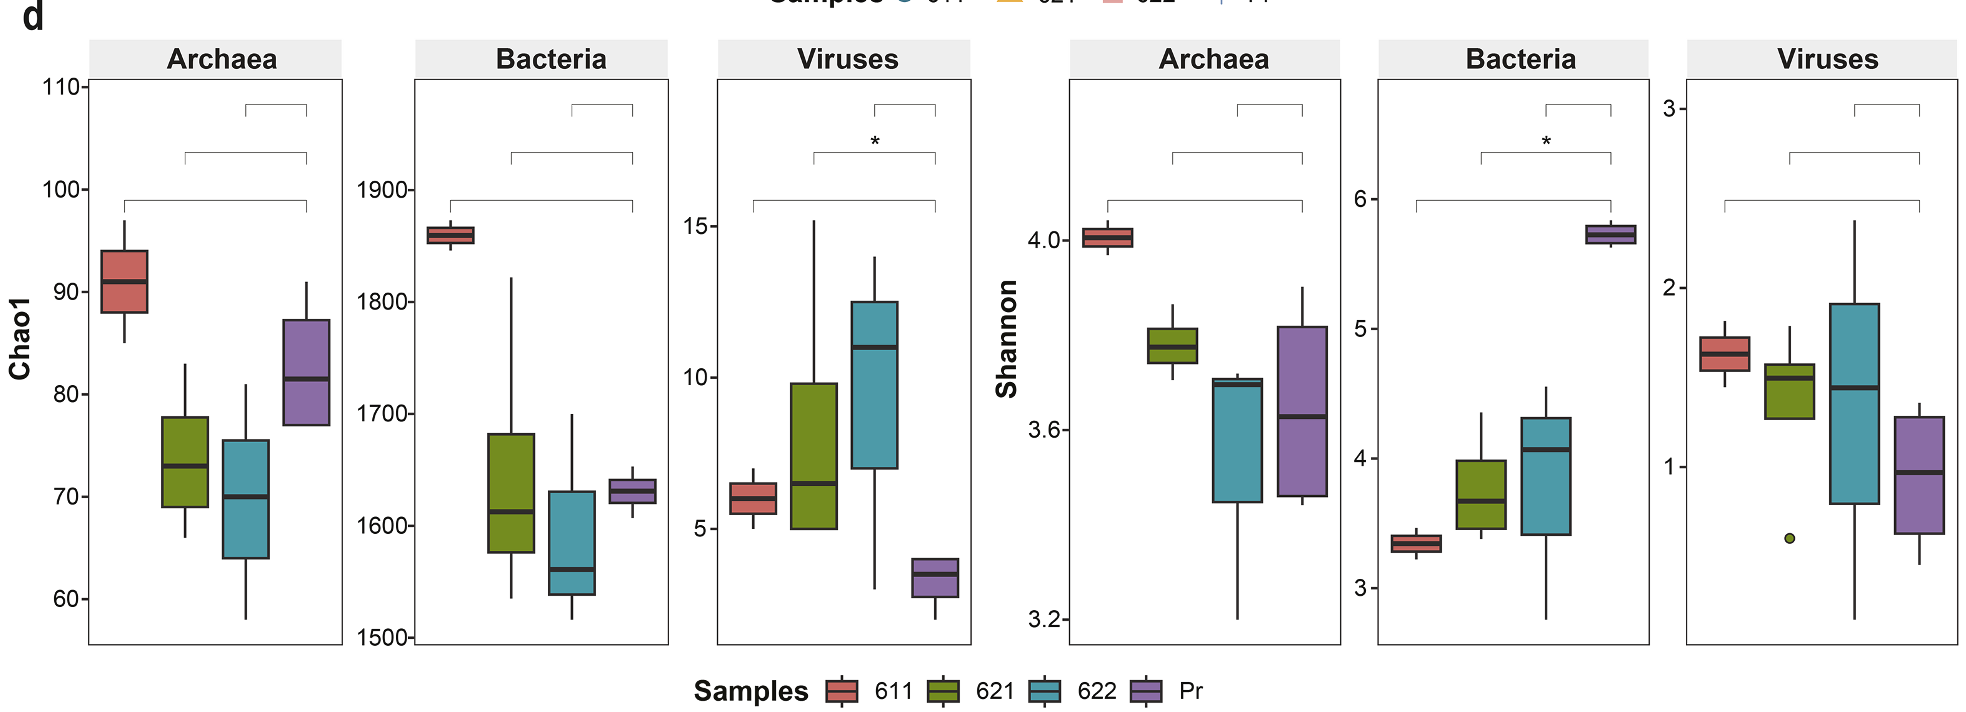
多样性与关键类群进一步量化了重组方向。城市地下水的细菌Shannon指数约3.68,山地约5.73,降低34%;在属水平,城市样点普遍由Pseudomonas主导,相对丰度超过约0.32,而山地由Streptomyces主导,相对丰度超过约0.23。门水平上,Actinomycetota在城市中从山地的大约0.25以上被替代,Pseudomonadota则从山地的约0.56升至城市的约0.86。论文用“互作型”与“压力耐受型”来概括这种替换,并把它与Actinomycetota更常参与协同代谢网络的生态角色相联系。
功能基因层面,论文使用差异丰度判据筛选显著变化:
其中 FC 是城市相对山地的基因丰度倍数变化,log2 压缩比例差异并让增加和减少在同一尺度可比;FDR 是多重比较校正后的假发现率,这里限制在不超过0.05。该判据在论文中的作用不是证明生态机制,而是把海量宏基因组基因从“看起来有差异”变成“可以进入后续通路和驱动分析”的稳定候选。若只要求P值而不要求倍数变化,极轻微但统计显著的基因漂移会被过度解释;若只看FC而不控制FDR,又容易把噪声当成污染信号。论文随后报告的功能基因下调与有机硫基因上调,正是在这一判据下筛选出来的。
基于这一判据,城市样点出现了跨位点的核心过程抑制。611中mer、sfnG、hao的Log2FC分别为-4.27、-4.29、-2.47;621中ddhC、nxrB、cdhE分别为-5.70、-5.54、-5.28;622中hao、vhuD、ddhA分别为-7.44、-6.55、-6.24。跨样本比较显示hao -4.60、nxrB -3.68、cdhC -3.21、cdhE -3.75、ddhA -3.09、ddhC -3.79、hzsA -3.33、mer -3.35,而acdB 2.23、dddT 2.94、tsdB 2.14、ttrC 2.44显著富集。这个模式并不只是“某些基因少了”,而是硝化、产甲烷、无机硫氧化等高能耗或关键路径普遍受抑,有机硫处理路径被补偿性抬升。
设计理由与控制变量:极端梯度如何放大人为信号
论文的方法选择有两个关键点。第一,端点比较不是随机选城市与山地,而是利用NH4+约28倍、NO3−约10倍的化学压力差,把人为污染从自然异质性中拉开。第二,古菌和病毒没有显著重排,为细菌响应提供了域内对照;但这也意味着论文不能把结论推广为“所有微生物域同样脆弱”。为了处理不同域的测序深度差异,论文对细菌、古菌和病毒分别稀有抽样,最低高质量reads分别为3877727、19504和138,说明病毒统计是在极低覆盖下得到的谨慎结果。
功能MAG重建也支撑了“潜力层面”的结论:论文共重建226个MAG,其中城市159个、山地67个,平均完整度89.77%、平均污染度3.55%。这些MAG的物种循环功能存在十倍差异:山地MAG如RBG-13-43-22和Rubrivivax sp.编码更多元素循环基因,城市MAG如Parcubacteria bacterium C7867-002和Peribacteraceae CAIKAD01功能容量更低。这个证据的边界在于,MAG只说明潜在编码能力,不等于原位活性;它强化了基因丰度下降并非偶然采样造成,但不能替代转录组或同位素示踪。
共现网络是论文最显眼的“拓扑崩塌”证据来源。论文用前1000个OTU、TPM归一化丰度和Spearman相关性构建网络,并采用固定过滤规则:
其中 表示两个OTU相对丰度序列之间的Spearman秩相关,正相关通常解释为共同栖息地、互作或共享响应,负相关常解释为竞争、排斥或生态位分化。该式的作用是排除弱相关和偶然相关,使网络只保留“强且统计稳健”的边。若把阈值降到更宽松,网络会重新长出大量低信噪边,城市与山地差异可能被噪声稀释;若阈值更高,网络又会过疏,模块度变化可能被过滤规则本身放大。论文没有给出不同阈值下网络指标的完整敏感性分析,因此网络坍塌的方向可信,但具体边数需要谨慎对待。
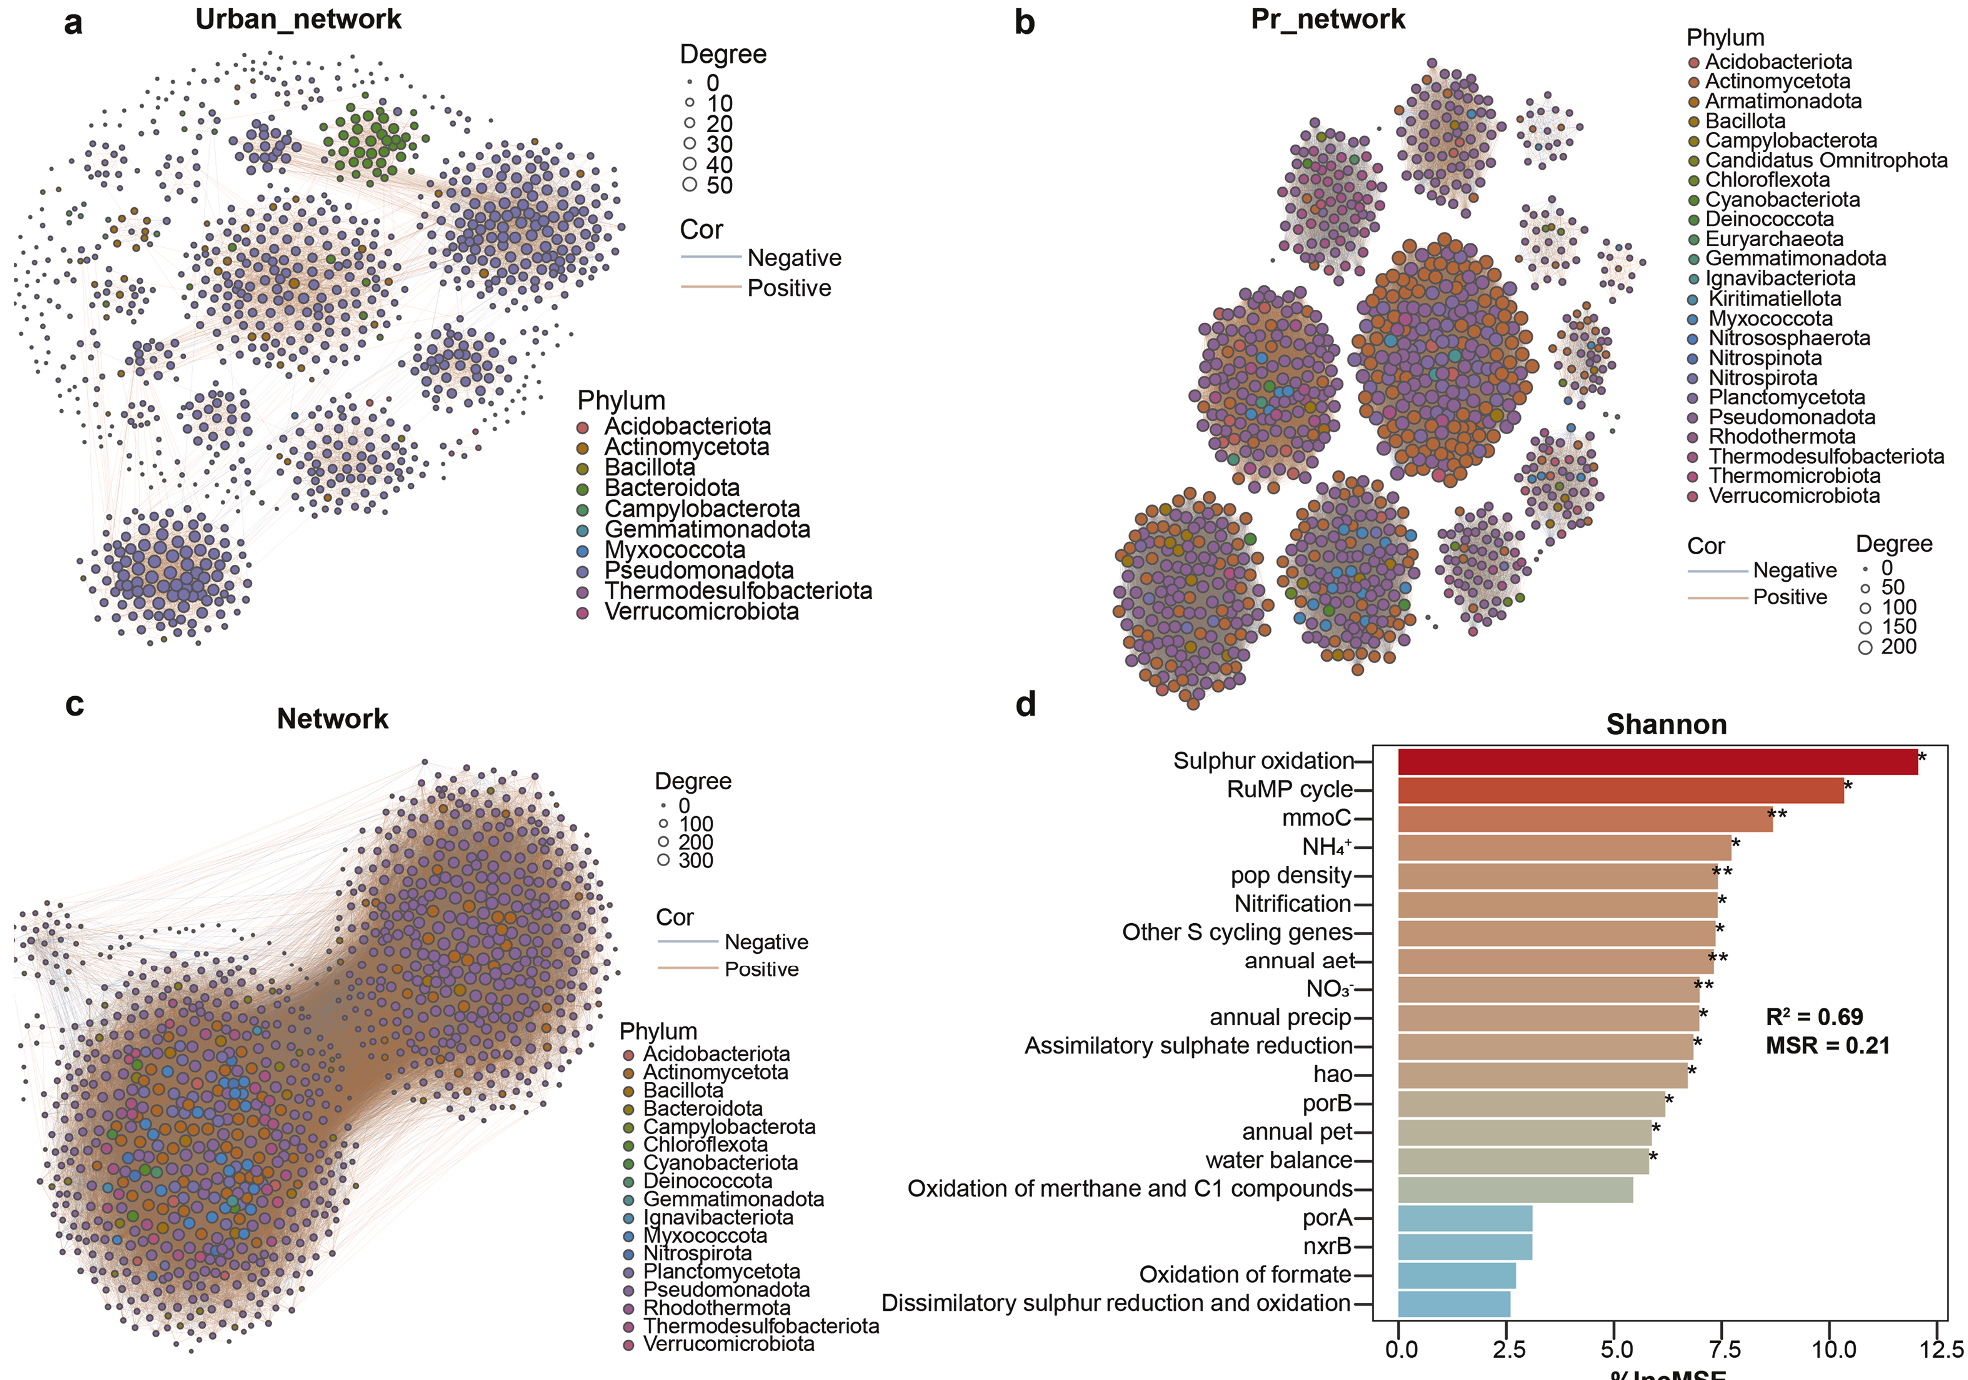
论文在网络部分还出现一个值得追问的细节:3.5节给出的山地和城市网络边数分别为8066和309,模块度分别为5.40和0.94;而3.6节和Fig.6对应的Table S5给出61139和6230,模块度分别为19.94和3.33。两组成论方向一致,都显示城市网络大幅简化,但绝对值差异很大。原文没有解释这种差异是否来自不同节点子集、是否使用全群落或关键功能群、或过滤步骤是否不同。这提示读者:拓扑坍塌是稳健现象,但网络复杂度指标高度依赖构建口径。
归因链条:为什么是NH4+而不是NO3−或pH
论文最有价值的贡献是把“污染压力”从一般性的氮素富集,收窄为NH4+对功能网络的特异性冲击。随机森林比较给出明确的优先级:
这里 是模型解释方差的比例,越高说明该环境变量与响应变量的统计关联越强;三个值分别对应论文中对功能基因谱或网络相关响应的模型解释力。相比NO3−和pH,NH4+的预测优势非常大。若只凭浓度倍数,NH4+和NO3−都升高,容易误判硝酸盐毒性;若只看pH,pH确实影响dddT和硝化速率,但模型解释力只有13%,远不足以成为主因。该式的边界也很明显:随机森林是预测与相关,不是实验扰动;它说明NH4+是最强候选驱动,而非直接证明NH4+单独导致所有变化。
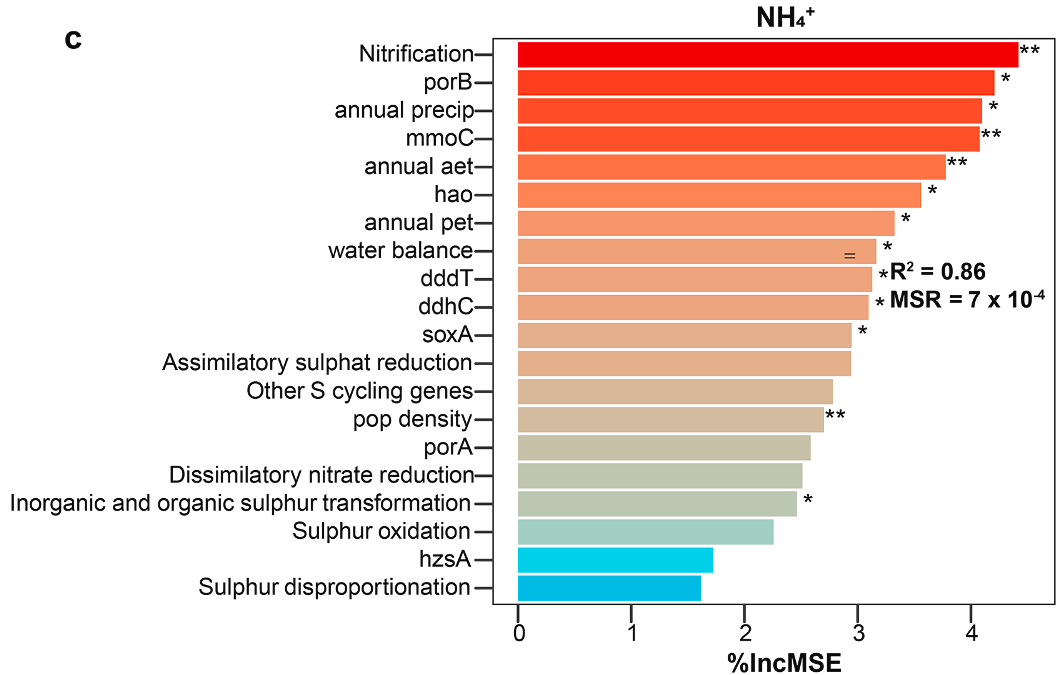
原文进一步把功能崩塌定位到hao基因。hao编码羟胺氧化还原酶HAO,负责把羟胺氧化为亚硝酸盐,是氨氧化第二步的限速过程。论文在3.5节报告NH4+显著影响nitrification、porB、mmoC、hao和年降水量等变量,且hao丰度解释硝化速率变异的76%,P低于0.01。相比nxr基因依赖钼蝶呤辅因子氧化亚硝酸盐为硝酸盐,HAO具有多血红素和P460型辅因子,对局部氮分子微环境更敏感。论文据此提出:高NH4+流可能通过改变局部pH或氧化还原微环境,或让中间产物在调控位点附近积累,导致hao下调,从而避免细胞毒性的羟胺累积,却把整个硝化模块拖垮。这个分子解释来自原文讨论,但它仍是机制假说,需要蛋白表达、酶活性或同位素通量数据验证。
实验与证据
主结果:化学污染与群落重组对应清晰
原文Fig.5直接呈现了理化参数与环境驱动的重要性。城市地下水NH4+约为山地28倍,NO3−约为10倍,pH降低;随机森林重要度分析中,NH4+对多个功能变量显著,NO3−对部分基因有影响,pH虽显著但模型解释力最低。
原文在群落和通路层面的关键量化结果可整理如下:
| 指标 | 山地系统 | 城市系统 | 变化 |
|---|---|---|---|
| 系统类型解释细菌组成变异 | 不适用 | 74% | R2为0.74,P低于0.001 |
| 细菌Shannon指数 | 约5.73 | 约3.68 | 降低34%,P低于0.01 |
| Pseudomonadota相对丰度 | 约0.56 | 约0.86 | 显著上升 |
| Actinomycetota相对丰度 | 大于约0.25 | 被Pseudomonadota替代 | 关键互作门下降 |
| 硝化通路差异 | 不适用 | 显著受抑 | P=0.019 |
| 同化硝酸盐还原通路 | 不适用 | 显著受抑 | P=0.024 |
这张表说明,群落在“谁在这里”和“谁能做什么”两层同时改变。Actinomycetota下降和Pseudomonadota上升不只是分类学偏好,而是与后续硫循环基因富集、网络正相关比例异常上升共同出现。论文用RDA进一步把变量空间对立化:硝化通路和年降水量聚在一侧,NH4+和人口密度聚在另一侧,说明人类压力已经覆盖了自然水文因素对群落结构的塑造。
拆解性证据:功能基因、网络指标与随机森林模型互相印证
原文3.6节和Table S5的网络指标,以及3.5节另一组数值,可整理如下:
| 网络口径 | 系统 | 边数 | 正相关比例 | 模块度 |
|---|---|---|---|---|
| Table S5 | 山地 | 61139 | 61.71% | 19.94 |
| Table S5 | 城市 | 6230 | 94.43% | 3.33 |
| Table S5 | 合并网络 | 73607 | 81.57% | 9.66 |
| 3.5节另一组 | 山地 | 8066 | 72.40% | 5.40 |
| 3.5节另一组 | 城市 | 309 | 91.59% | 0.94 |
解读这张表不能只看绝对边数。城市网络边数下降接近九成,模块度下降约83%,正相关比例从山地约62%升至94%,共同指向一种失去生态位分化的低复杂状态。论文称其为“僵尸网络”,意思是物种之间更多表现为共享环境胁迫,而不是稳定互作或竞争分化。Table S5数值更强,3.5节数值较弱但方向一致;这种内部不一致并不削弱主结论,却暴露了网络参数对构建规则的敏感性。
原文3.2节中具有代表性的差异基因可整理如下:
| 基因 | 过程 | 城市相对山地的Log2FC |
|---|---|---|
| hao | 羟胺氧化与硝化 | 汇总-4.60;622中-7.44;611中-2.47 |
| nxrB | 亚硝酸盐氧化 | 汇总-3.68;621中-5.54 |
| cdhE | 产甲烷相关 | 汇总-3.75;621中-5.28 |
| ddhC | 二甲基砜降解或硫代谢 | 汇总-3.79;621中-5.70 |
| dddT | 有机硫代谢 | 2.94 |
| tsdB | 有机硫代谢 | 2.14 |
这张表的核心信息不是“某个基因下降”,而是下降与上升同时存在:硝化和无机硫氧化受抑,有机硫处理路径被补偿。论文据此推导出潜在恶性循环:有机硫代谢产物如H2S可能抑制反硝化菌,进而增强氮截留,使系统更难恢复。这一链条在原文中属于功能基因丰度与文献机制共同支持的解释,不是通过直接测定H2S和反硝化速率证明的。
证据质量评估:哪里稳健,哪里仍需实验闭环
证据最强的是“城市污染端点下细菌群落重排、功能基因下调、网络简化”这三件事的共现性。它们来自不同统计工具:PCoA和PERMANOVA支持群落结构分离,EdgeR支持基因丰度变化,网络拓扑支持互作结构坍塌,随机森林支持NH4+优先驱动。多个独立分析方向一致,这是该论文超过单纯描述性宏基因组的地方。古菌稳定、病毒无系统分离、重金属低于检测限,也提供了边界条件,说明细菌响应不是所有微生物域都同等显著,也不是重金属混杂主导。
证据最弱的是从“相关”走向“因果”的闭环。端点设计把上海与加州的自然背景差异放大,但并未在同一含水层内做NH4+梯度或加氮扰动实验;Site 611只有n=2,原文自己也提醒其结论为探索性。功能基因丰度代表潜在编码,不等同于表达和通量;网络边数依赖阈值和节点筛选,且原文存在两套网络数值。论文未提供消融实验,例如移除人口密度或年降水量后模型解释力如何变化,也未给出不同网络阈值下的模块度敏感性。因此,“NH4+导致网络坍塌”应理解为统计优先驱动和生态级联假说,而不是已经完成的实验因果证明。
深度洞察与总结
总结
本文的核心贡献是把人为氮污染的生态后果写成一条可检验的级联:外部NH4+输入升高,触发细菌群落从Actinomycetota互作网络向Pseudomonadota压力耐受网络转换;高能耗的硝化、产甲烷和无机硫氧化基因被抑制,其中hao基因成为硝化速率变异的强预测因子;功能模块受损进一步导致共现网络连接数、模块度和竞争负相关占比同步下降,城市地下水微生物群落进入高正相关、低复杂性的脆弱状态。论文提出的双轨修复框架正是对这条链的回应:只降低NH4+浓度不够,还需要重建关键类群、保护古菌缓冲层并调控硫循环反馈。
局限性
第一,端点比较无法完全分离人类污染与地理背景差异:上海与Calistoga在气候、降水、人口密度和水文历史上不同,论文虽以NH4+统计优先度缓解这一担忧,但没有同一地点的时间序列或受控加氮实验。第二,网络构建规则敏感,Spearman相关阈值、节点度过滤和不同Table之间的口径差异,会影响边数和模块度绝对值。第三,H2S抑制反硝化的“氮硫恶性循环”主要基于基因富集和文献机制推断,缺少H2S、硝酸盐还原速率和稳定同位素通量的直接测量。第四,Site 611样本量为2,只能作为探索性点位;病毒域数据在稀有化后reads极低,结论不宜过度外推。
未来展望
下一步最有技术含量的验证,应是在同一含水层尺度做NH4+梯度中宇宙或原位加氮实验,同时用qPCR、转录组、蛋白质组和稳定同位素探针追踪hao、nxr、ddh、dddT和tsdB的表达与通量,区分潜在基因池变化与真实过程活性。工程修复上,可以把“恢复模块度”做成可量化目标:通过控制NH4+源强、保护Nitrosopumilus等古菌缓冲层、选择性接种或富集Actinomycetota类群、监测硫代中间产物积累来重建生态位分化,而不是仅以污染物去除率作为终点。若这类网络指标在多个含水层中可重复,地下水管理可能从浓度阈值治理,走向生态韧性阈值治理。