
LASER 复合物:打破僵局,揭示溶酶体膜修复的损伤感知转换器
LASER couples damage sensing to ESCRT assembly for lysosome repair
本文通过全基因组 CRISPRi 筛选发现了溶酶体修复的关键机制 LASER 复合物。该复合物的核心成员 TFG 在溶酶体损伤时,通过感知钙信号并结合 ATG8 家族蛋白,精准招募 ESCRT-I 组分 TSG101 启动膜修复,实现了损伤感知与 ESCRT 组装的定点耦合。
TL;DR
溶酶体作为细胞的“回收站”,其膜破裂会释放蛋白酶导致细胞死亡。加州大学伯克利分校的研究团队近期在 Nature 发表论文,揭示了一个名为 LASER 的多组分蛋白装配体。该工作发现 TFG 蛋白能通过感知溶酶体损伤产生的钙泄露和 ATG8 脂质化信号,像“传感器”一样迅速从内质网易位至受损溶酶体,并利用寡聚效应高效招募 ESCRT 机器进行“补胎”。
核心动机:ESCRT 如何精准“空降”受损位点?
ESCRT (Endosomal Sorting Complex Required for Transport) 是细胞内功率强大的膜变形机器,能修复微小的膜裂口。但在溶酶体损伤的复杂场景下,ESCRT-I 如何被招募到损伤部位一直是未解之谜:
- 为何 ubiquitination 逻辑行不通? 在内体形成中依赖泛素识别,但在溶酶体快速修复中,泛素化通常出现较晚,主要介导溶酶体自噬(Lysophagy),而非即时修复。
- 钙传感器之谜:虽然已知损伤会引起钙释放,但已知的钙结合蛋白(如 ALG2)在不同类型的膜损伤中表现不一,缺乏普适性。
作者通过在 NPC1 缺失(对损伤敏感) 的遗传背景下进行全基因组 CRISPRi 筛选,从成千上万个基因中精准锁定了 TFG (Trk-fused gene)。
机制解析:TFG 及其带来的 LASER 效应
TFG 通常驻扎在内质网出口位点 (ERES),但在溶酶体受损后 5 分钟内,它就会迅速发生空间易位。
1. 损伤锚定:ATG8 的新角色
损伤触发的钙释放会导致溶酶体膜上发生 CASM (Conjugation of ATG8 to Single Membranes) 过程。TFG 序列中含有多个 LIR (LC3-interacting region) 基序,其中 LIR2 是其定位的关键导航仪。
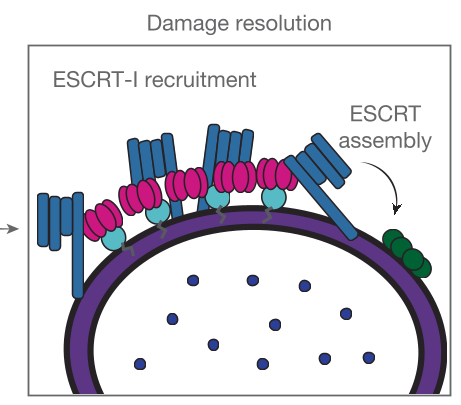 上图展示了 LASER 介导的修复模型:钙泄露 -> CASM -> TFG 易位 -> ESCRT 聚合
2. 招募核心:PSAP 基序与寡聚亲和力
招募 ESCRT-I 的关键在于 TFG 上的一个保守 PSAP 基序。然而,单个 PSAP 与 TSG101 的相互作用很弱。TFG 的聪明之处在于它的 PB1 和 CC (Coiled-coil) 结构域。这些结构域促使 TFG 形成环状寡聚体。
- Avidity (多价协同亲和力):多个 TFG 分子聚在一起,呈指数级增强了对 ESCRT 组分的捕获能力,确保修复过程一旦开启就能产生足够的聚合动力。
实验战绩与临床关联
作者对比了 TFG 缺失与 TSG101 缺失的效果:
- 性能下降:在 TFG 敲除细胞中,溶酶体修复效率大幅受损,导致 Galectin-3(损伤标记)积累增加。
- SOTA 对比:TFG 对 ESCRT-III (CHMP4B) 的招募作用是决定性的,其影响力不亚于 ESCRT 体系内的核心组分。
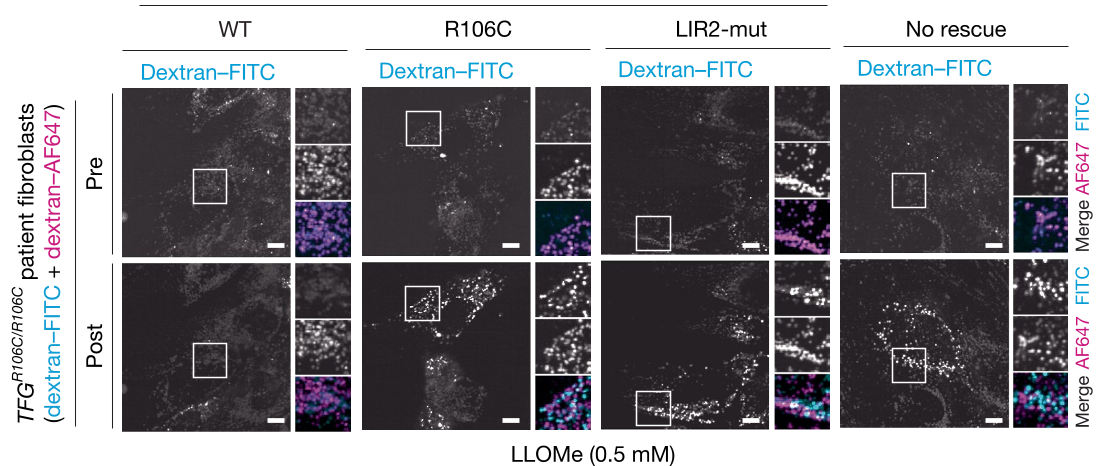 实验数据显示,在 HSP 相关的 R106C 突变株中,ESCRT 的招募显著减少,直接关联到神经退变表型。
深度洞察:秘密隐藏在 ER-溶酶体接触点
这项工作最妙的一点在于揭示了 ERES (内质网出口) 竟然是修复因子的“弹药库”。 这种设计避免了修复蛋白在细胞内乱窜引起的误报风险。只有当 VAP 蛋白 介导的 ER-溶酶体接触位点形成,且钙信号和 ATG8 信号同时具备时,TFG 才会“泄露”到溶酶体膜上。
局限性与展望
虽然 LASER 定义了动力学上的早期修复路径,但对于“不可修复”的大尺度膜破裂,LASER 是如何关停并转交给溶酶体自噬途径的?此外,TFG 的液-液相分离 (LLPS) 性质在膜受损局部是否形成了更高浓度的“修复微区”,仍值得进一步验证。
结语
LASER 复合物的发现填补了细胞生物学中“膜损伤感知”到“膜结构重塑”之间的逻辑断层。对于开发者和生信研究者而言,这种从全基因组筛选出发、通过结构域功能分析落地到疾病机理的研究范式,是寻找复杂生物系统规律的典范。