
MitoFLARE:线粒体“鞭毛”失调如何引燃脓毒症免疫风暴?
Mitochondrial flagella-like extensions (MitoFLARE) dysfunction triggers STING-mediated immune dysregulation in sepsis
本文发现了一种名为 MitoFLARE 的线粒体鞭毛状延伸结构,揭示了脓毒症(Sepsis)中线粒体从早期“主动适应”到晚期“共生失调”的动态演变。研究证实,MitoFLARE 的功能障碍会导致 mtDNA 释放并激活 cGAS-STING 通路,从而诱发免疫失调和器官损伤。
TL;DR
线粒体不仅是细胞的能量工厂,更是免疫调控的“前哨”。《Nature Communications》最新刊载的一项深度研究发现,在脓毒症初期,线粒体会长出像鞭毛一样的延伸结构(MitoFLARE)来维持通讯;然而,当炎症失控,这种结构会崩溃并释放 mtDNA,通过 cGAS-STING 路径引爆免疫失调。这一发现重新定义了脓毒症中线粒体与宿主细胞的动态共生关系。
背景定位:从融合到“纳米管”的进化策略
传统的线粒体生物学关注融合(Fusion)与分裂(Fission)的平衡。但在脓毒症这种极端的炎症压力下,细胞内的肌动蛋白网会像“牢笼”一样困住线粒体。为了突破物理限制,线粒体进化出了一套类似细菌鞭毛的应激策略——MitoFLARE。该研究精细刻画了这一结构从“主动救灾”到“溃败伤主”的全过程。
痛点深挖:为什么线粒体通讯会中断?
研究者发现,脓毒症导致线粒体动力的一个关键转向:从长距离奔跑变为局部震荡。
- 骨架围困:LPS 诱导 TRAK1 发生 O-GlcNAc 糖基化,增强其与 FHL2 的结合,在线粒体周围织起密集的肌动蛋白网。
- 通讯转型:传统的直接融合因空间受限无法进行,线粒体被迫伸出 MitoFLARE(纳米管)寻找远方的伙伴。
- 崩溃节点:随着病情推移,MICOS-SAM 复合物(链接线粒体内外膜的“锚点”)受损,MitoFLARE 失去了内膜支撑,化为脆弱的“幽灵管”。
核心机制:内质网“夹钳”与微管牵引
MitoFLARE 是如何长出来的?作者提出了精妙的物理模型:
- ER-Mito 夹钳:内质网通过接触位点固定住线粒体膜,形成收缩点,充当延伸的起始“基座”。
- 分子马达拉伸:钙信号激活 KIF5A-Miro1 复合体,利用微管作为轨道,将线粒体膜向外生拉硬拽,形成长达 30 微米的隧道。
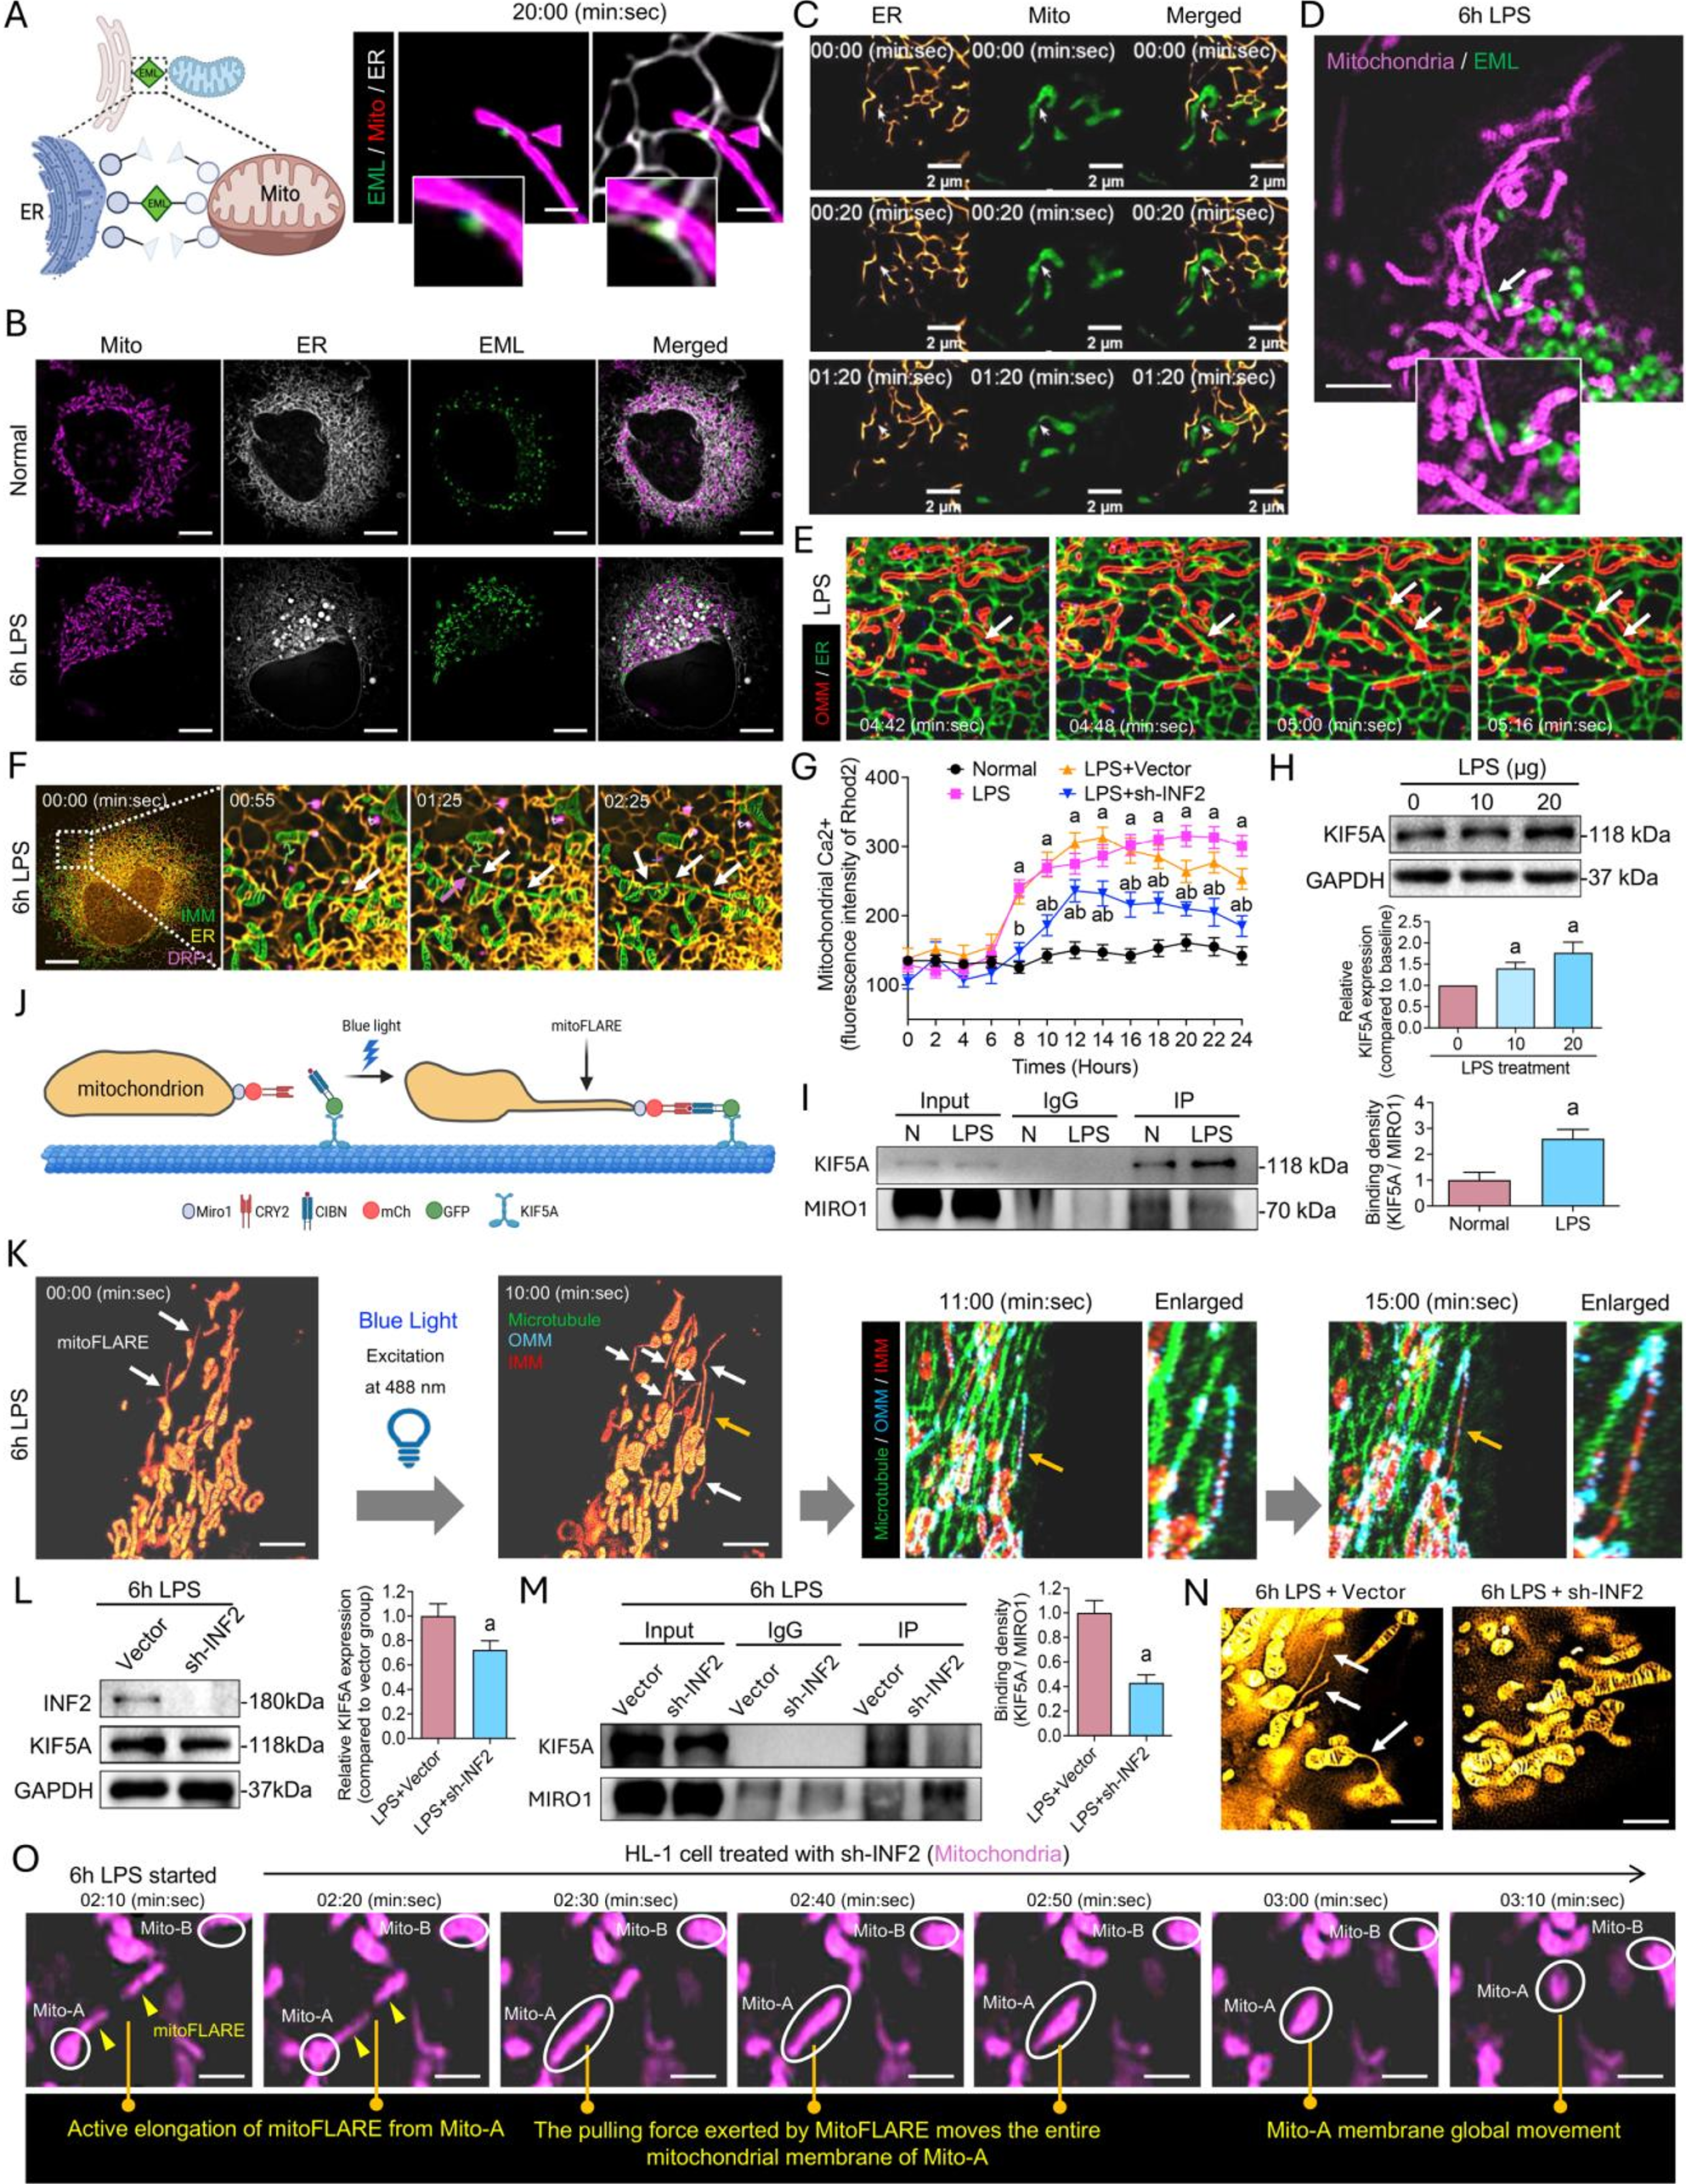 图注:图中展示了内质网作为“夹钳”启动线粒体膜凸起,并由 KIF5A 马达蛋白驱动延伸的过程。
实验战绩:当防御武器变成“生化炸弹”
当 MitoFLARE 无法维持内膜完整性时,其外膜在 Drp1 和 DNM2 的作用下发生断裂。这时,原本锁在线粒体内的 mtDNA 会通过 BAX 孔道逃逸到细胞质中。
- 免疫激活:胞质 mtDNA 被 cGAS 识别,激活 STING-TBK1-IRF3 通路,释放 TNF-α 等炎症因子。
- 器官保护:在 Drp1 敲除(心脏特异性)的小鼠中,脓毒症引起的心脏收缩力下降得到显著逆转。
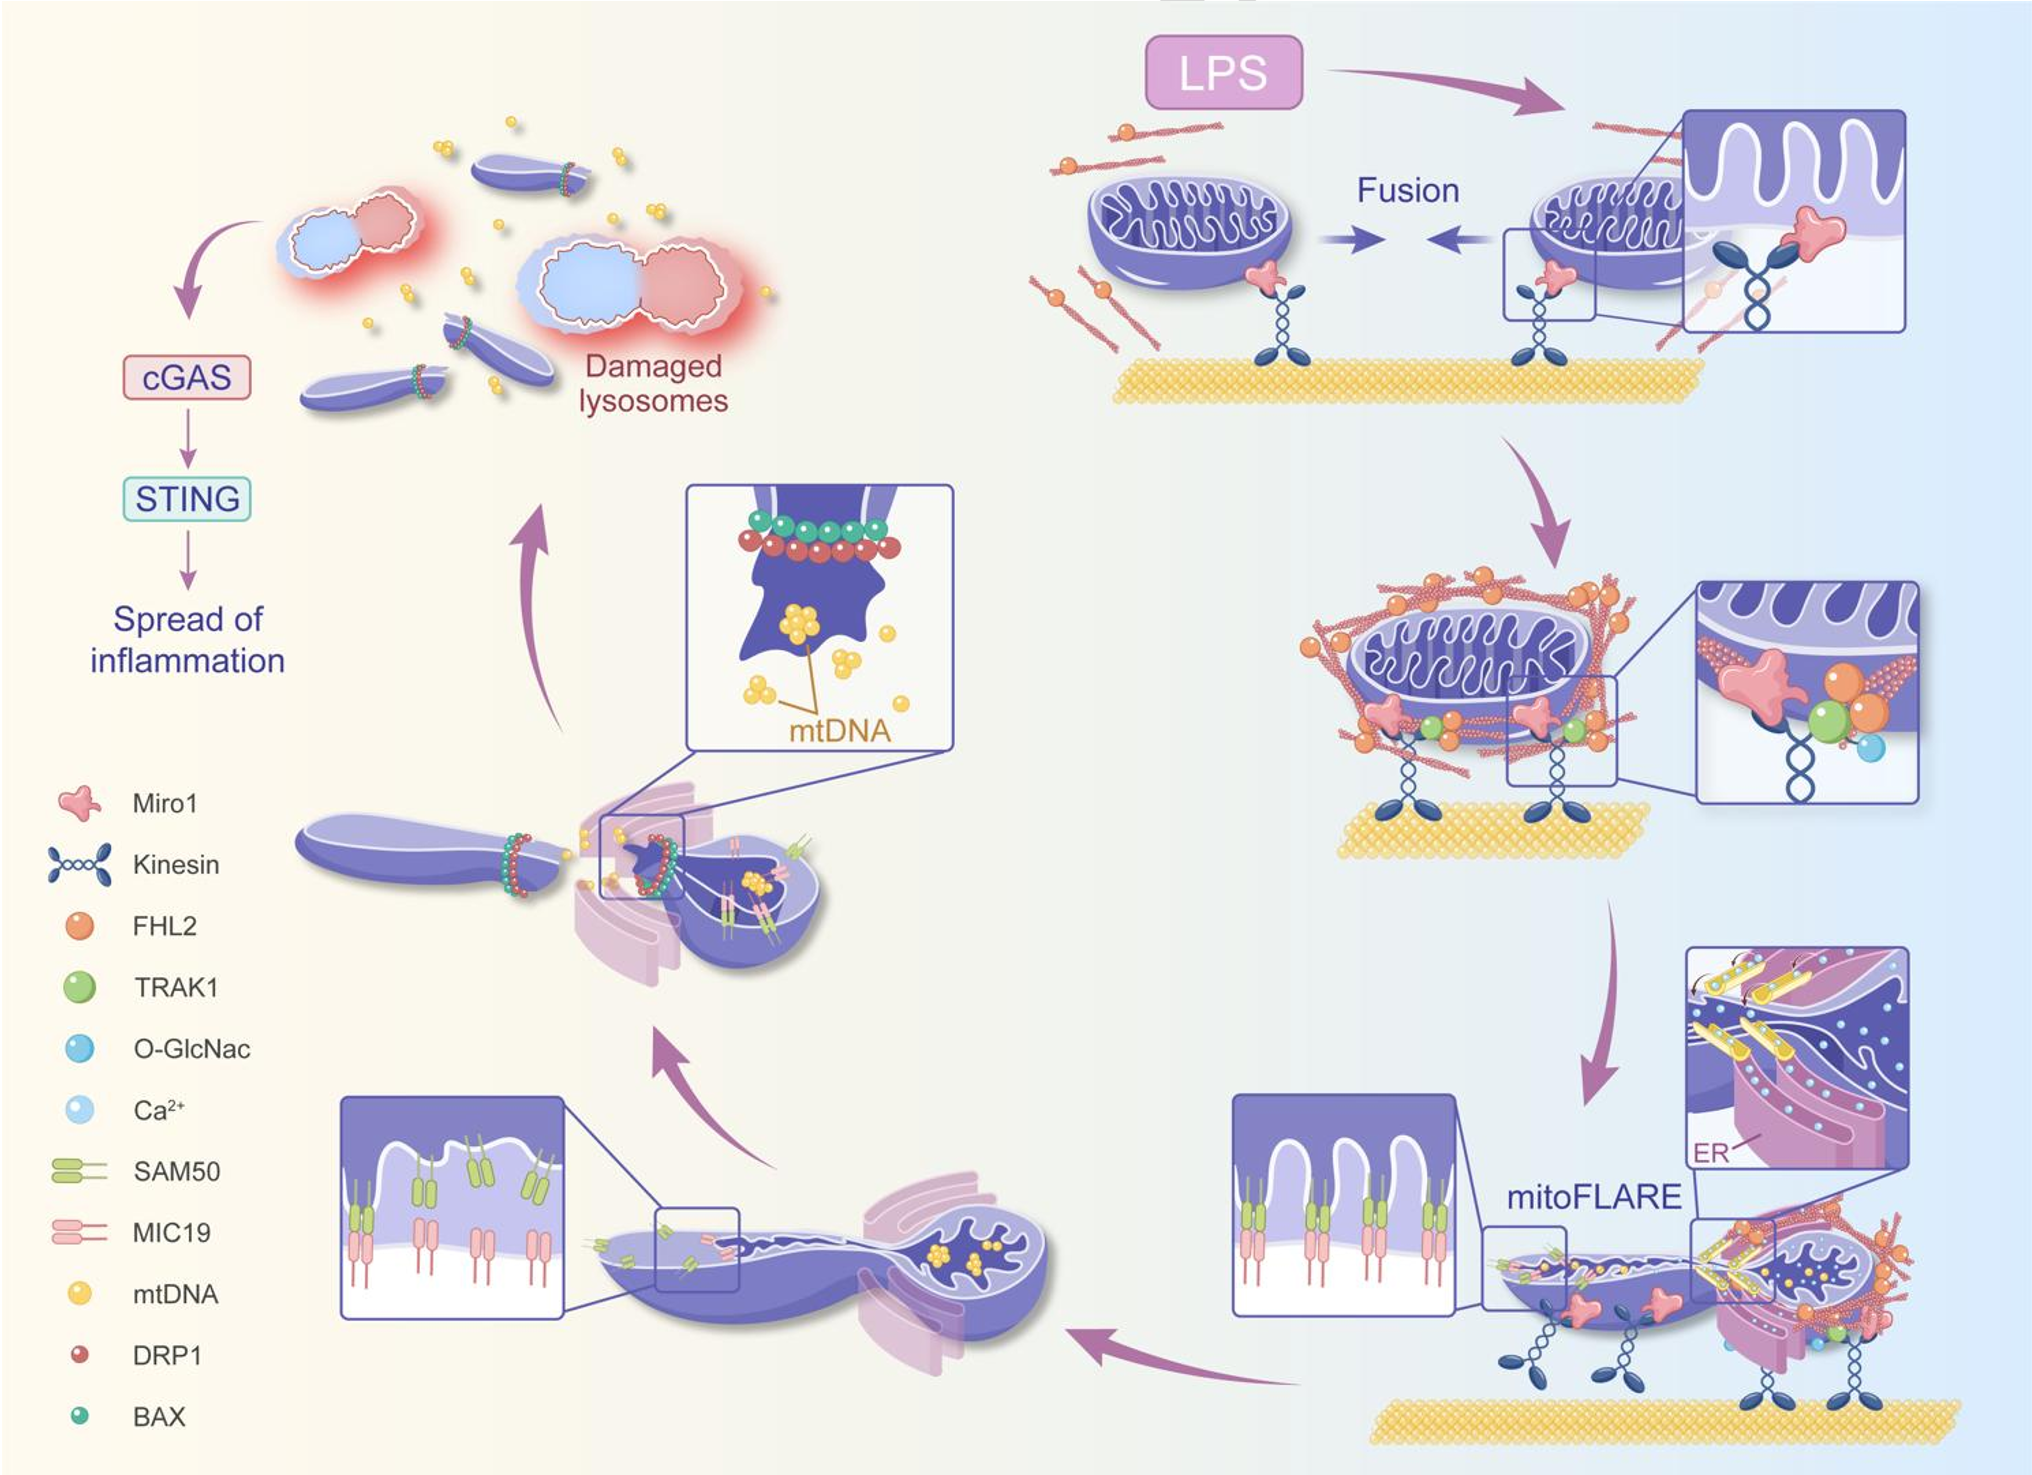 图注:从自适应补偿到病理失调的演变模型。左侧为早期代偿期,右侧为晚期崩溃期,清晰展示了 mtDNA 释放触发免疫风暴的过程。
深度洞察:共生关系的破裂
这项研究最深刻的直觉在于:它将线粒体视为一个具有“生存意志”的共生体。MitoFLARE 的形成是线粒体在恶劣环境下的自救(类似于植物生长趋光性),而脓毒症的破坏力正在于它摧毁了这种自救机制。
核心贡献总结:
- 定义新术语:提出了 MitoFLARE,补充了线粒体纳米管在病理状态下的动态特征。
- 揭示分子轴:确立了 TRAK1-FHL2(启动)和 MICOS-SAM(维持)作为调节核心。
- 临床启示:针对线粒体锚定蛋白的保护,可能比单纯抑制线粒体分裂更能有效缓解脓毒症。
局限性与展望
尽管该工作在细胞和动物层面逻辑自洽,但人体内是否存在完全一致的 MitoFLARE 动态仍需样本验证。此外,不同器官(如代谢活跃的肝脏与电活动频繁的心脏)对 MitoFLARE 失调的耐受性是否存在差异,将是未来长文本机制研究的重点方向。